旋转培养不只改变形状,它直接改写了肝类器官的干性开关
HepaRG 在自制旋转平板腔(10 rpm、离心力 <1.5×10⁻³ g)自组装 7 天:3 天 EdU+ 约 56% vs 22%,SOX9 蛋白约 8.8 倍;7 天 948 个差异基因;机制为整合素 α6β4 外周富集 → YAP 核转位 → 干性标志物上调,Verteporfin 阻断后效应消失。
旋转培养不只改变形状,它直接改写了肝类器官的干性开关
Rotating culture regulates the formation of HepaRG-derived liver organoids via YAP translocation
Shaoyu Zhong, Lu Zheng, Yi Wu, Shujin Sun, Qing Luo, Guanbin Song, Dongyuan Lü, Mian Long | BMC Biology 2024, 22(1), 262 | DOI: 10.1186/s12915-024-02062-1 | PMID: 37920845 | PMCID: PMC11568593 标签: #类器官 #旋转培养 #回转器 #模拟微重力 #肝类器官 #YAP #整合素 #机械信号转导 #干性维持
📣 摘要
这篇 2024 年的 BMC Biology 研究回答了一个对做动态培养的人绕不开的问题:旋转培养到底改变的是类器官的"形态",还是类器官的"身份"?
作者用一台自制的旋转平板腔(Rotating Flat Chamber,RFC),把 HepaRG 人肝祖细胞包在 Matrigel 穹顶里做 7 天自组装,与静态培养做严格对照。两组用的是同一批种子细胞、同一块 Matrigel、同一套培养基,唯一变量是"转不转"。
结果出乎意料 —— 差异不在形态,而在干性:
- 早期更快更大:RFC 组在前 5 天最大投影面积显著高于静态组(p<0.05 至 p<0.001),3 天时 EdU+ 阳性比例约 56% vs 22%(p<0.0001);到 7 天两组面积趋于持平
- 干性标志物被拉高:SOX9 与 CD44 在 3 天和 7 天的蛋白与 mRNA 水平双双显著升高;3 天时 SOX9 蛋白相对表达量从对照的 1.0 升到约 8.8 倍
- 机制落到一条轴上:全转录组在 7 天检出 948 个差异基因(620 上调 / 328 下调),KEGG 富集里出现 PI3K-Akt、HIF-1、MAPK、Hippo、PPAR、JAK-STAT、TNF、FoxO 等通路;其中机械感受分子 ITGA6/ITGB4 整合素与 YAP1 同时升高
- YAP 真的进了核:RFC 组 YAP 核/胞质强度比从对照的约 0.95 升到约 1.1,同时磷酸化 YAP 占比(p-YAP/YAP)从约 1.0 降到约 0.7 —— 这正是 YAP 被激活的经典生化特征
- 反向验证成立:加 YAP-TEAD 抑制剂 Verteporfin(VP,0.1 μM)后,YAP 核转位被压回、p-YAP/YAP 回升、YAP 下游靶基因 CCND1 与 CYR61 表达下降,SOX9 与 CD44 一并被压回对照水平 —— 旋转培养的干性效应被证明依赖 YAP 转录活性
核心技术选择有四条:把"转"作为唯一变量(其余全同);把时间点拆成早期(3 天)与晚期(7 天)分别测(发现效应主要在早期);用转录组 + 免疫染色 + 蛋白 + mRNA 四层证据锁定同一条通路(整合素→YAP→干性标志物);最后用小分子抑制剂做反向验证而不是停在相关性。
需要说明的一点:论文摘要与讨论段把该整合素写作 α4β6-integrin,而正文 Results 段与 Figure 4 图注、Figure 2 基因热图均写作 α6β4-integrin(ITGA6/ITGB4),Figure 7 工作模型图面也标注 α6β4。基因名与图面一致指向 α6β4,摘要与讨论处的 "α4β6" 应为该论文自身的笔误。
🔬 研究背景
为什么要在乎重力矢量? 论文的出发点不是"太空育种",而是一个更基础也更贴近产业的机制问题:力学信号能不能改变类器官的分化命运?
作者在背景里给出三条线索。第一,肝脏的力学微环境本身就在调命运 —— 组成类器官的肝(祖)细胞处在肝脏的机械微环境里,机械负荷(剪切力、牵张、血压)、细胞外基质硬度、基底微拓扑、细胞或克隆形状都是和生化因子并列的调控变量。第二,微重力有真实的生理后果 —— 小鼠在太空飞行 13.5 天后即出现肝细胞脂滴增多、视黄醇减少、肝重增加、细胞外基质沉积增加,呈现非酒精性脂肪肝与纤维化表型;航天员长期飞行也面临肝脏增大与肝病风险上升。第三,地基回转器(clinostat)是模拟微重力的标准手段 —— 通过持续旋转不断改变样本相对重力矢量的朝向,形成"时间平均零重力矢量条件";作者的判断是细胞可能存在"重力感受器",而重力矢量改变速度远快于细胞感知重力所需的时间,因此回转器有可能复现微重力的典型生物学效应。
但这个领域有一个真实的矛盾没解决。 作者明确指出:肝细胞在不同回转器工具下的读数是不一致的 —— 在旋转壁式生物反应器(RWV)中 HepG2 细胞增殖被促进,在随机定位机(RPM)中 HepG2 与 CCL-13 细胞增殖却被抑制。既有研究只回答了"旋转能不能让细胞长得更好",没有人问过"旋转能不能改变类器官本身怎么构建、构建出来的类器官还是不是原来那个身份"。
第二个空白在通路层面。 Hippo 通路的核心效应因子 YAP 已知可以响应重力改变 —— 在国际空间站或二维回转器上培养的成年心血管祖细胞会诱导 YAP 及其靶基因 SOD2(细胞存活标志物)表达;但在 RPM 或"芯片上的微重力"条件下,胶质母细胞瘤细胞与间充质干细胞的 YAP 核转位又受损。而细胞通过整合素(integrin)感知胞外力学线索:其头部可与 I 型胶原、层粘连蛋白、纤连蛋白结合,引起 β 亚基胞内尾段构象变化,招募踝蛋白 talin,后者结合黏着斑蛋白 vinculin,进而连到 F-actin。
所以本文真正的问题有三个:
- 能否:旋转培养能否改变肝类器官的形成过程本身?
- 通过什么:其中的 YAP 与整合素是否参与?
- 是不是必需:阻断 YAP 后,旋转培养的效应是否消失?
🧪 实验方法
设备
作者使用的是自制旋转平板腔 RFC(Rotating Flat Chamber),由中科院力学研究所国家微重力实验室自建,结构包括细胞培养腔、旋转平台、电机与附件,可沿长轴以不同转速旋转。装置本体绘于论文 Figure 1A(标注 "RFC" 的彩色三维示意图)。
关键运行参数(均为原文值):
- 转速 10 rpm(绕轴旋转,用于抵消重力效应)
- 离心力估计 < 1.5 × 10⁻³ g(按转速与基底几何尺寸估算,作者说明该值基本足以避免人工重力干扰)
- 腔体内部净空间 66 mm(长)× 19 mm(宽)× 3 mm(高),培养基总量约 3.8 mL
- 培养基底为商用细胞培养载玻片(25 mm × 75 mm,Nunc)
细胞模型
人肝祖细胞 HepaRG(Biochemistry and Cell Biology, Shanghai),按厂商说明在 T 瓶中以 William's E 培养基 + 10% FBS + 1% 青链霉素、37 °C、5% CO₂ 培养,每 2 天换液;80–90% 融合时胰酶消化,接种进 RFC 培养腔或静态培养腔(对照)。HepaRG 是一种双能性肝祖细胞 —— 这一点是后文"干性"判读的关键前提。
实验处理
接种:8 × 10⁴ 至 10 × 10⁴ 个 HepaRG 细胞与 400 μL Matrigel 混合成 20 个穹顶(dome),接种于培养载玻片,即每个穹顶 4 × 10³ 至 5 × 10³ 个细胞。Matrigel 凝固后无气泡地填入培养基(作者明确说明这是为了尽量减小对细胞的剪切力)。培养 7 天自组装形成肝生长类器官(HGO,HepaRG-derived liver growth organoid),静态培养腔为对照,每 2 天换液。
时间点:光学成像取 1、3、5、7 天四个时间点,用 ImageJ 自动计算最大投影面积、长宽比(aspect ratio)与圆度(circularity)。
YAP 抑制:在旋转培养最后 24 小时向培养基中加入 0.1 μM Verteporfin(VP,MCE),阻断 YAP 与转录因子 TEAD 的结合。
分析指标
- 活死染色:Calcein/PI 试剂盒(Beyotime),37 °C 避光 50 min,Hoechst 33342 染核,LSM 880(Zeiss)共聚焦成像
- 增殖:EdU 50 μM,37 °C 避光 2 h,4% 多聚甲醛固定、0.3% Triton X-100 透化,click 反应 30 min,LSM 880 成像
- 转录组:全基因组 RNA-seq(1、3、7 天,RFC vs 静态),火山图 + 聚类热图 + GO 富集(BP / CC)+ KEGG 富集(Top 20)
- 蛋白与 mRNA:Simple Western(SoF,见文献 29)+ qPCR
- 免疫定位:ITGA6、ITGB4、SOX9、CD44、YAP、F-actin、Hoechst;沿虚线扫描的平均荧光强度(MFI)与外周/内部 MFI 比值(n ≥ 15)
📊 核心结果与配图
1. 旋转培养让肝类器官在前 5 天长得更快、更圆,第三天是效应峰值
| 维度 | 说明 |
|---|---|
| 做了什么 | HepaRG + Matrigel 穹顶在 RFC(10 rpm)与静态腔中平行培养,取 1/3/5/7 天四个时间点做光学成像与形态自动定量(n ≥ 30),并在 3 天与 7 天做 EdU 掺入(n ≥ 45) |
| 发现什么 | RFC 组前 5 天最大投影面积显著高于对照(p<0.05 至 p<0.001),7 天两组无显著差异;圆度在前 3 天更高、长宽比更接近 1(更圆),5 天后两组收敛;EdU+ 比例 3 天时对照约 22% vs RFC 约 56%(p<0.0001),7 天时约 22% vs 约 32%(仍 p<0.0001);两种条件下 3 天与 7 天均未观察到死细胞 |
| 说明什么 | 旋转培养的作用不是持续的、越久越好,而是集中在建库早期(约 3 天)—— 这恰好是客户实操最关心的窗口期;同时"无坏死"说明该装置支持至少 7 天的长期三维培养,设备本身不构成损伤源 |
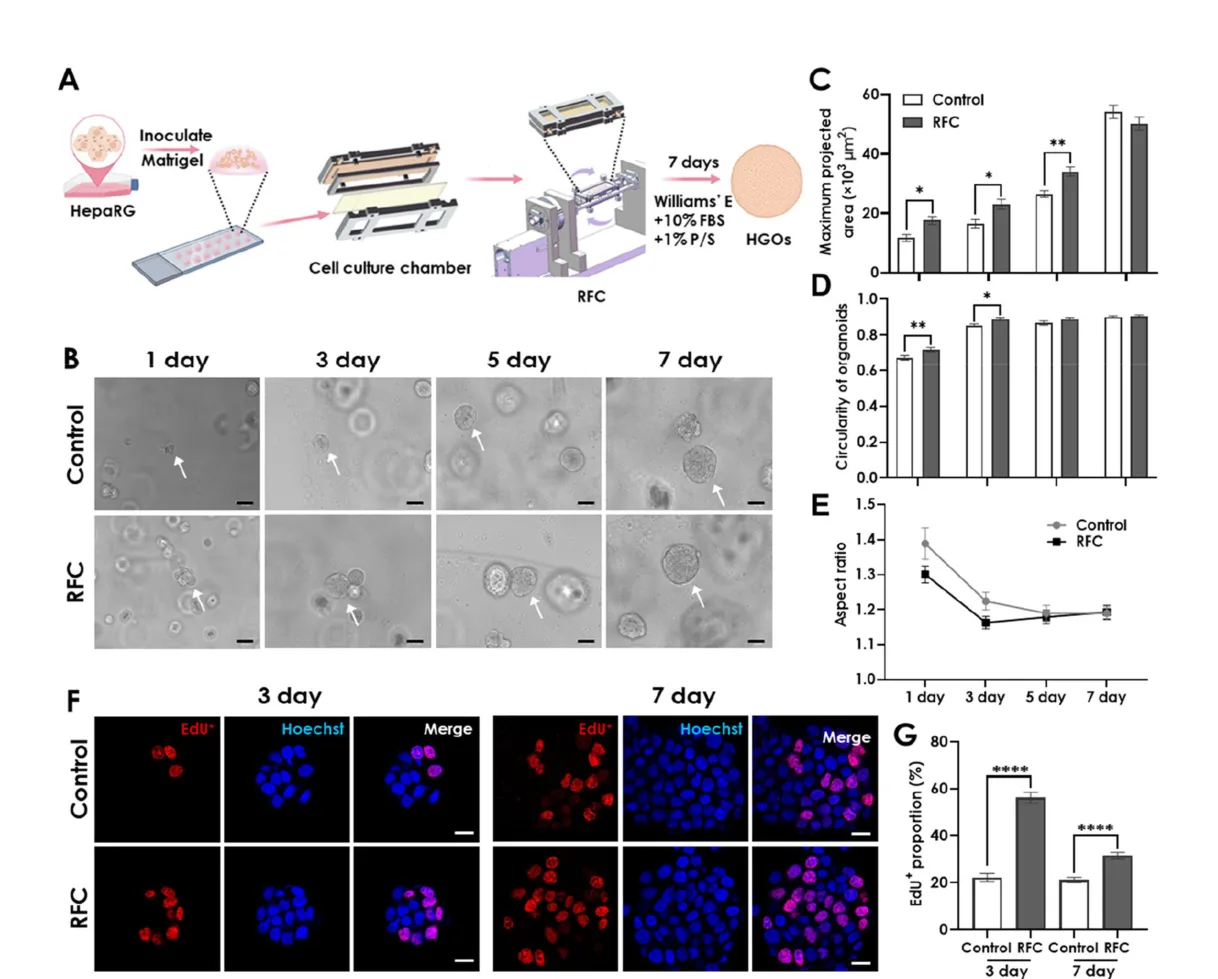
Fig 1:旋转培养促进 HepaRG 来源肝生长类器官(HGO)的生长与增殖。A 为使用旋转平板腔(RFC)构建 HGO 的示意图,其中彩色三维装置下方明确标注 "RFC",培养基条件标注 Williams' E + 0.1% FBS + 1% P/S,培养周期 7 天;B 为 RFC 与静态对照两组在 1、3、5、7 天四个时间点的明场图像,Control 与 RFC 各一行、四个时间点各一列,白色箭头指示典型 HGO,比例尺 50 μm;C–E 依次为最大投影面积(×10³ μm²)、圆度(0–1)与长宽比的定量,白色柱为 Control、深灰柱为 RFC,n ≥ 30,显著性标注 P < 0.05、0.01**、0.0001****,C–E 采用双因素方差分析;F 为 3 天与 7 天 EdU+(红)与 Hoechst(蓝)及 Merge 的代表图,比例尺 20 μm;G 为 EdU+ 占 Hoechst+ 的比例定量,n ≥ 45,柱高可读为 3 天时对照约 22%、RFC 约 56%,7 天时对照约 22%、RFC 约 32%。*
2. 全转录组把线索指向整合素与 YAP:7 天 948 个差异基因
| 维度 | 说明 |
|---|---|
| 做了什么 | 对 1、3、7 天 RFC 与对照的 HGO 做全基因组 RNA-seq,做火山图、全基因组聚类热图、GO 富集(生物学过程 BP / 细胞组分 CC)与 KEGG Top 20 富集,并对一组关注基因做表达热图 |
| 发现什么 | 1 天与 3 天几乎无显著差异,仅在 7 天出现明显聚类改变 —— 累计效应;7 天共 948 个差异基因(620 上调、328 下调);上调者含干性标志(SOX9、CD44)、机械感受分子(ITGA6、ITGB4、YAP1)、骨架蛋白(PXN、TUBB4A、FLNB)与存活标志(SOD2);KEGG Top 20 含 PI3K-Akt、HIF-1、MAPK、Hippo、PPAR、JAK-STAT、TNF、FoxO、Rap1、p53、Focal adhesion 等;GO-CC 富集到细胞连接(cell junction)、细胞-细胞连接、细胞外基质与细胞骨架 |
| 说明什么 | 作者在背景里承认"不同回转器读数互相矛盾",本研究给出的答案是:差异不是在 1–3 天出现的,而是在第 7 天才被转录组看见 —— 形态学差异(3 天)远早于转录差异(7 天),这解释了为什么过去只看终点读数的研究会得出互相矛盾的结论;HIF1A 在 7 天上调而 3 天未变,作者解释为旋转组早期增殖更快、耗氧更多,缺氧信号继而反过来维持干性 |
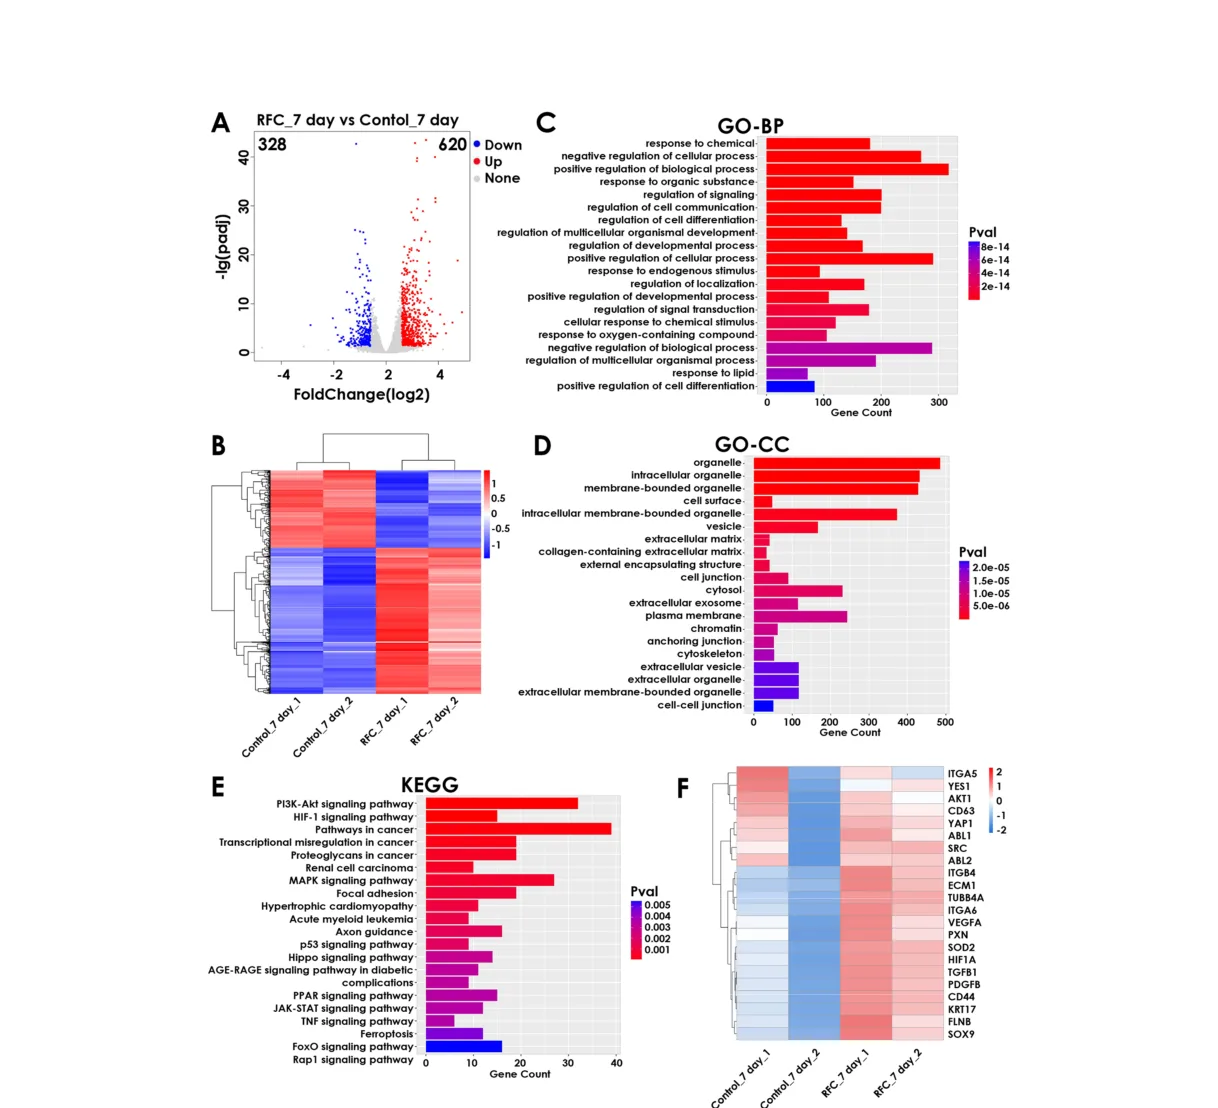
Fig 2:全基因组 RNA-seq 与 GO、KEGG 富集分析。(需注意:F 图热图中的 AKT1、ECM1、ITGA5、PDGFRB 等基因名,以及 E 图中的 Ferroptosis、Rap1 通路名,均为图面标注,本研究正文未对这些条目逐一展开论述,故本页按图面实际标注列出。)A 为 RFC_7 day 与 Control_7 day 差异表达基因火山图,横轴 FoldChange(log2)、纵轴 -lg(padj),图例区分 Down(蓝)、Up(红)、None(灰),图面可读出下调 328 与上调 620 两个数字;B 为全基因组表达模式聚类热图,样本列依次为 Control_7 day_1、Control_7 day_2、RFC_7 day_1、RFC_7 day_2,配行列聚类树,色标范围 −1 至 1;C 为 GO 生物学过程(GO-BP)富集条形图,横轴 Gene Count 0–300,右侧 Pval 色标可读 8e-14 至 2e-14,可辨识条目含 response to chemical、regulation of cell differentiation、regulation of multicellular organismal development 等;D 为 GO 细胞组分(GO-CC)富集条形图,横轴 Gene Count 0–500,Pval 色标 2.0e-05 至 5.0e-06,可辨识条目含 organelle、cell surface、extracellular matrix、cell junction、cytoskeleton、cell-cell junction 等;E 为 KEGG 通路富集条形图,横轴 Gene Count 0–40,Pval 色标 0.005 至 0.001,通路名可读为 PI3K-Akt signaling pathway、HIF-1 signaling pathway、Pathways in cancer、MAPK signaling pathway、Focal adhesion、p53 signaling pathway、Hippo signaling pathway、PPAR signaling pathway、JAK-STAT signaling pathway、TNF signaling pathway、Ferroptosis、FoxO signaling pathway、Rap1 signaling pathway 等;F 为带基因名的关注基因表达热图,可读基因含 ITGA5、YES1、AKT1、YAP1、ITGB4、ECM1、TUBB4A、ITGA6、VEGFA、SOD2、HIF1A、PDGFRB、CD44、FLNB、SOX9 等。
3. 干性标志物 SOX9 与 CD44 在蛋白和 mRNA 两个层面同时被推高
| 维度 | 说明 |
|---|---|
| 做了什么 | 对 3 天与 7 天的 HGO 做 SOX9 与 CD44 的免疫荧光定位(SOX-9 红、CD44 黄、F-actin 绿、Hoechst 蓝)、Simple Western 蛋白定量(E、G,N ≥ 3)与 qPCR mRNA 定量(F、H) |
| 发现什么 | 3 天:SOX9 与 CD44 的蛋白表达在 RFC 组显著升高(SOX9 相对蛋白表达由对照的 1.0 升至约 8.8 倍,p<0.0001;CD44 约 1.0 升至约 1.8,p<0.01),mRNA 层面 SOX9 约 1.6 倍(p<0.05),CD44 升高但标为 ns;7 天:两者蛋白与 mRNA 均显著升高(SOX9 mRNA 约 2.7 倍,CD44 mRNA 约 4.4 倍,p<0.001);定位上 RFC 组 SOX9 与 CD44 在细胞边缘呈极性分布,对照则弥漫于细胞内 |
| 说明什么 | 3 天是蛋白层面分水岭(CD44 的 mRNA 升高此时还看不出来),7 天是转录层面分水岭(CD44 mRNA 此时才显著)—— 提示做早期形态判读时,不能只测 mRNA,蛋白与定位分布更灵敏;结合 HepaRG 的双能性,SOX9/CD44 双升意味着 HGO 的未分化/多向分化潜能被保留住了,而不是被提前推向成熟 |
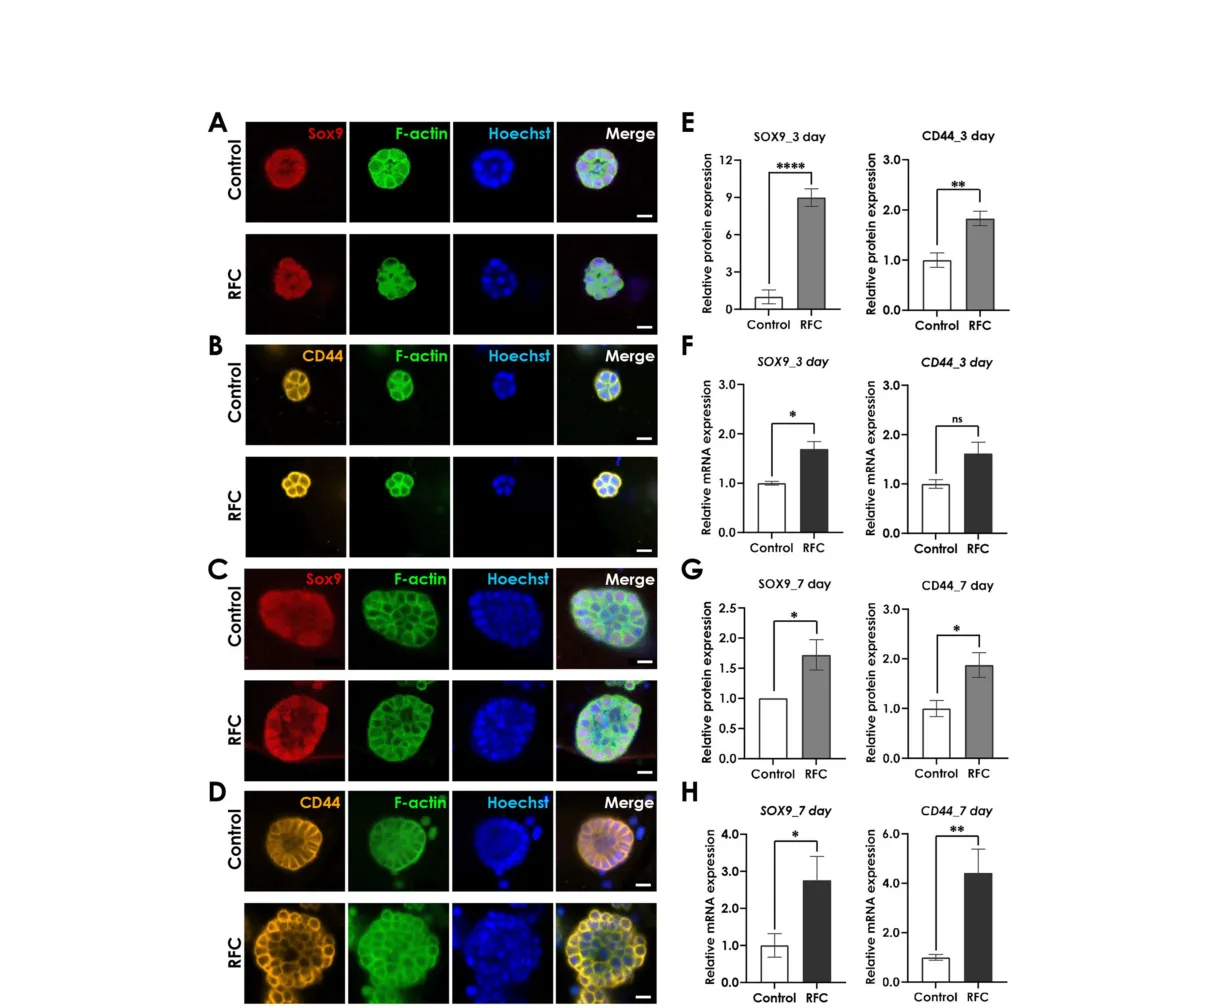
Fig 3:旋转培养在第 3 天或第 7 天维持 HGO 的干性。A–D 为代表性染色图像,SOX-9(红,A、C)、CD44(黄,B、D)、F-actin(绿)与 Hoechst(蓝)在 RFC 与静态对照两组中的分布,A、B 对应 3 天,C、D 对应 7 天,比例尺 20 μm,Merge 图中可见细胞边缘的极性分布;E、G 为 Simple Western 分析与 SOX9(左)、CD44(右)蛋白表达定量,F、H 为对应基因的 qPCR 分析,N ≥ 3,双尾 Student t 检验,显著性标注 P < 0.05、0.01**、0.001***、0.0001****,F 中 CD44 的 mRNA 比较标注为 ns。*
4. 机械感受分子 α6β4 整合素升高并向类器官外周富集
| 维度 | 说明 |
|---|---|
| 做了什么 | 检测整合素两个亚基 ITGA6(图面标 ITGA6,橙)与 ITGB4(图面标 ITGB4,红)的蛋白(Simple Western,N ≥ 3)与 mRNA(qPCR)水平;免疫荧光定位后沿虚线扫描计算平均荧光强度 MFI 与外周/内部 MFI 比值(n ≥ 15) |
| 发现什么 | mRNA:ITGA6 在 RFC 组约 1.8 倍(p<0.05)、ITGB4 约 2.8 倍(p<0.001),两者均显著升高;蛋白:ITGB4 显著升高(约 1.0 → 1.6,p<0.05),ITGA6 蛋白升高未达显著(ns);空间分布:两者均在类器官外周高表达、内部弥漫,且此分布模式在 3 天与 7 天、旋转与静态之间一致;MFI 外周/内部比值:ITGA6 由对照约 1.7 升至约 3.0(p<0.001),ITGB4 由约 2.0 升至约 2.8(p<0.01) |
| 说明什么 | 这一步把"机械刺激"和"分子响应"接上了:外周/内部 MFI 比值翻近一倍(ITGA6 从 1.7 到 3.0)意味着整合素不是均匀升高,而是被重新分配到了类器官的外表面 —— 正是旋转培养中液体绕流、洗刷类器官外表面那一层力学最集中的位置;蛋白层面 ITGA6 未显著而 mRNA 显著,提示亚基分泌/装配存在时间差 |
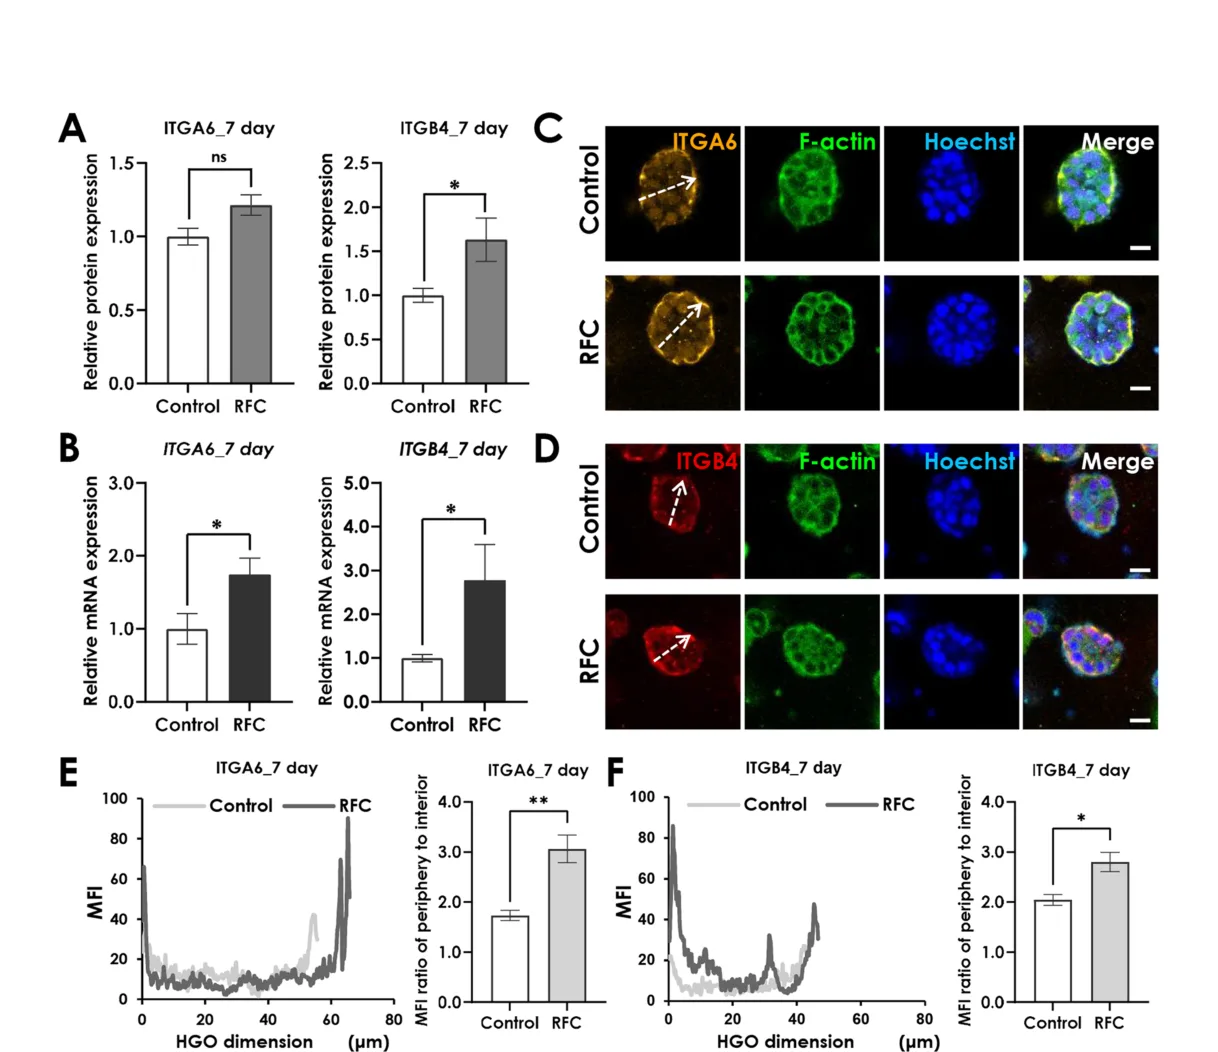
*Fig 4:旋转培养促进 7 天 HGO 中 α6-(ITGA6)与 β4-(ITGB4)整合素亚基的表达。A 为 ITGA6(左)与 ITGB4(右)蛋白表达的 Simple Western 分析与定量,N ≥ 3,ITGA6 两组比较标注 ns,ITGB4 标注 *;B 为对应基因的 qPCR 分析,ITGA6 标注 *、ITGB4 标注 ***,N ≥ 3;C、D 为免疫荧光图像,ITGA6 呈橙色、ITGB4 呈红色,F-actin 呈绿色、Hoechst 呈蓝色,另有 Merge 图,图中白色虚线箭头标示细胞外周位置,比例尺 20 μm;E、F 分别为 ITGA6 与 ITGB4 沿 C、D 中虚线箭头方向的平均荧光强度(MFI,纵轴 0–100)曲线,横轴为 HGO dimension(μm,0–80),以及外周与内部 MFI 比值(纵轴 0.0–4.0)的柱状定量,Control 为浅灰、RFC 为深灰,ITGA6 比值 Control 约 1.7、RFC 约 3.0 标 ***,ITGB4 比值 Control 约 2.0、RFC 约 2.8 标 ,n ≥ 15。
5. YAP 被激活:表达升高、核转位增强、磷酸化比例下降
| 维度 | 说明 |
|---|---|
| 做了什么 | 对 3 天与 7 天 HGO 做 YAP 免疫荧光(洋红)+ F-actin(绿)+ Hoechst(蓝),计算核/胞质强度比(n ≥ 80);Simple Western 测 p-YAP/YAP(N ≥ 3);qPCR 测 YAP mRNA(N ≥ 3) |
| 发现什么 | 3 天:YAP 表达在 RFC 组显著升高,核/胞质强度比由对照约 0.95 升至约 1.1(p<0.01),p-YAP/YAP 由约 1.0 降至约 0.7(p<0.05),YAP mRNA 由 1.0 升至约 2.0(p<0.05);7 天:核/胞质比约 1.0 → 约 1.1(p<0.05),p-YAP/YAP 约 1.0 → 约 0.6(p<0.05),YAP mRNA 约 1.0 → 约 2.2(p<0.05);免疫荧光显示 7 天时 RFC 组 YAP 极性分布于类器官外周,对照则弥漫均匀 |
| 说明什么 | 三个指标同向(总 YAP↑、核/胞质比↑、p-YAP/YAP↓)是 YAP 被激活的标准生化signature —— 磷酸化的 YAP 留在胞质、未磷酸酸化才入核调控转录,所以 p-YAP/YAP 下降与核转位上升互为因果;YAP mRNA 在 3 天即近 2 倍,比形态指标出现得还早,这是把 YAP 通路用在早期工艺控制上的价值点 |
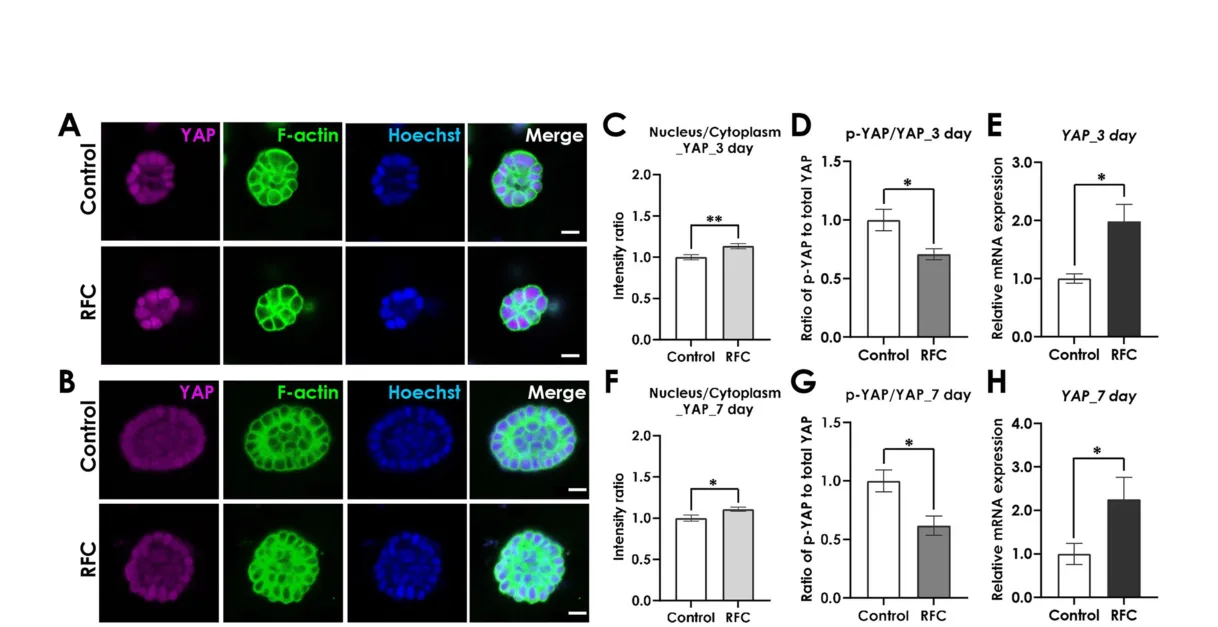
*Fig 5:旋转培养促进 HGO 中 YAP 的表达与核转位。A、B 为 RFC 与静态对照两组在 3 天(A)与 7 天(B)的代表性染色图像,YAP 呈洋红、F-actin 呈绿色、Hoechst 呈蓝色,Merge 图右下角有白色比例尺;C、F 为 A、B 中 YAP 的核/胞质荧光强度比定量(纵轴 Intensity ratio 0.0–2.0),n ≥ 80,C 标 **、F 标 *;D、G 为 HGO 中 p-YAP/YAP 蛋白表达的 Simple Western 分析与定量(纵轴 Ratio of p-YAP to total YAP 0.0–1.5),N ≥ 3,D 标 *、G 标 *;E、H 为 YAP mRNA 表达的 qPCR 分析(纵轴 Relative mRNA expression,E 为 0.0–3.0、H 为 0.0–4.0),N ≥ 3,均标 。
6. 反向验证:阻断 YAP-TEAD 后,旋转培养的干性效应被抹平
| 维度 | 说明 |
|---|---|
| 做了什么 | 在旋转培养最后 24 小时加入 0.1 μM Verteporfin(VP),阻断 YAP 与 TEAD 结合;检测 YAP 核/胞质比(n ≥ 40)、p-YAP/YAP(N ≥ 3)、YAP 下游靶基因 CCND1 与 CYR61 的 mRNA,以及干性标志物 SOX9 与 CD44 的蛋白与 mRNA(N ≥ 3) |
| 发现什么 | VP 使 YAP 核/胞质比下降(3 天:Control 约 1.00→0.82,RFC 约 1.12→0.86;7 天:Control 约 1.00→0.75,RFC 约 1.08→0.82),p-YAP/YAP 回升(3 天 RFC 约 0.72→1.52;7 天 RFC 约 0.62→1.28),旋转组与静态组之间的 YAP 表达差异消失;下游靶基因 CCND1(3 天 RFC 约 1.65→0.22)与 CYR61(3 天 RFC 约 3.10→1.90)被压低;干性标志物随之崩塌 —— 3 天 SOX9 蛋白 RFC 约 8.8 → 0.4、CD44 蛋白约 1.80 → 0.40,7 天 SOX9 mRNA 约 2.35 → 1.05、CD44 mRNA 约 4.40 → 0.80 |
| 说明什么 | 这是全文最硬的一步:不是"观察到 YAP 升高所以猜它重要",而是用抑制剂把 YAP 通路掐断,看旋转培养的表型是否随之消失 —— 结果是消失,说明 YAP 转录活性是旋转培养维持干性的必要环节而非伴随现象;SOX9 蛋白从 8.8 倍掉到 0.4 倍的幅度,说明这条轴的贡献量级与旋转培养本身相当 |
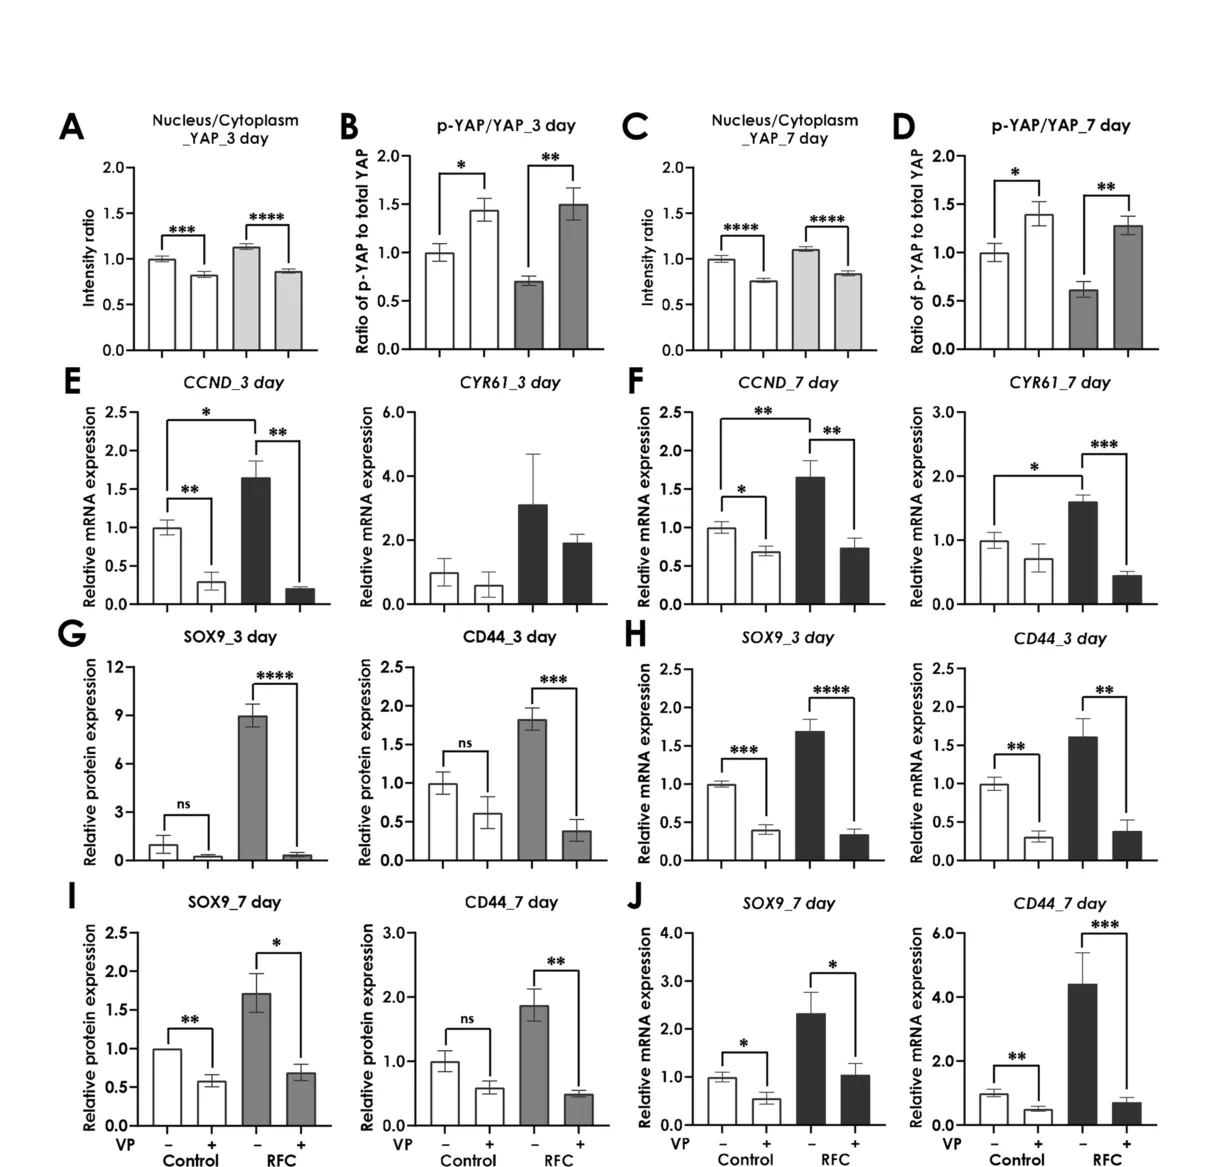
Fig 6:抑制剂 VP 削弱旋转培养诱导的 YAP 激活并消除 HGO 的干性维持。A、C 为 3 天与 7 天 HGO 的 YAP 核/胞质强度比定量(纵轴 Intensity ratio 0.0–2.0),n ≥ 40;B、D 为 p-YAP/YAP 蛋白表达的 Simple Western 分析与定量(纵轴 0.0–2.0),N ≥ 3;E、F 为 VP 处理下 CCND1 与 CYR61 的 mRNA 表达定量(纵轴 Relative mRNA expression,E 为 0.0–2.5、F 为 0.0–3.0),N ≥ 3;G、I 为 3 天与 7 天 SOX9(左)与 CD44(右)蛋白表达的 Simple Western 定量(G 纵轴 0–12、I 纵轴 0.0–2.5),N ≥ 3;H、J 为对应的 mRNA 定量(H 纵轴 0.0–2.5、J 纵轴 0.0–4.0),N ≥ 3;底部组别标注为 VP、Control、RFC 与 −/+ 两栏,每根柱为 VP 处理组相对对照的归一化值,双尾 Student t 检验。
7. 作者提出的工作模型
| 维度 | 说明 |
|---|---|
| 做了什么 | 把前述全部证据汇总为一张机制示意图(图面标注 Rotational culture、Simulated microgravity effect、α6β4、YAP、P、Nucleus、TEAD、VP、Multipotency、SOX9↑、CD44↑) |
| 发现什么 | 旋转培养 → 模拟微重力效应 → 整合素 α6β4 膜受体感知外力 → YAP 磷酸化状态改变并向细胞核转位 → 核内 YAP 与 TEAD 协同作用于 DNA → SOX9↑、CD44↑ → 类器官多向分化潜能(Multipotency) 维持或增强;VP 以抑制线作用于 YAP–TEAD 支路,切断后 SOX9 与 CD44 表达下降、类器官形成被废除 |
| 说明什么 | 这张图的价值在于把"旋转培养"从一个物理操作,翻译成了一条可被药物干预的信号通路 —— 对做药筛或毒理的实验室而言,意味着一旦拿到这类 HGO,可以用 YAP 抑制剂反向验证某个表型是不是由干性维持驱动,而不是单纯的代谢差异 |
| 读图提醒 | 图面标注的整合素为 α6β4,与论文正文 Results 段及 Figure 4 图注一致;摘要与讨论段所写的 "α4β6" 与图面及基因名(ITGA6/ITGB4)不符,应为该论文自身的笔误,此处按图面实际标注描述 |
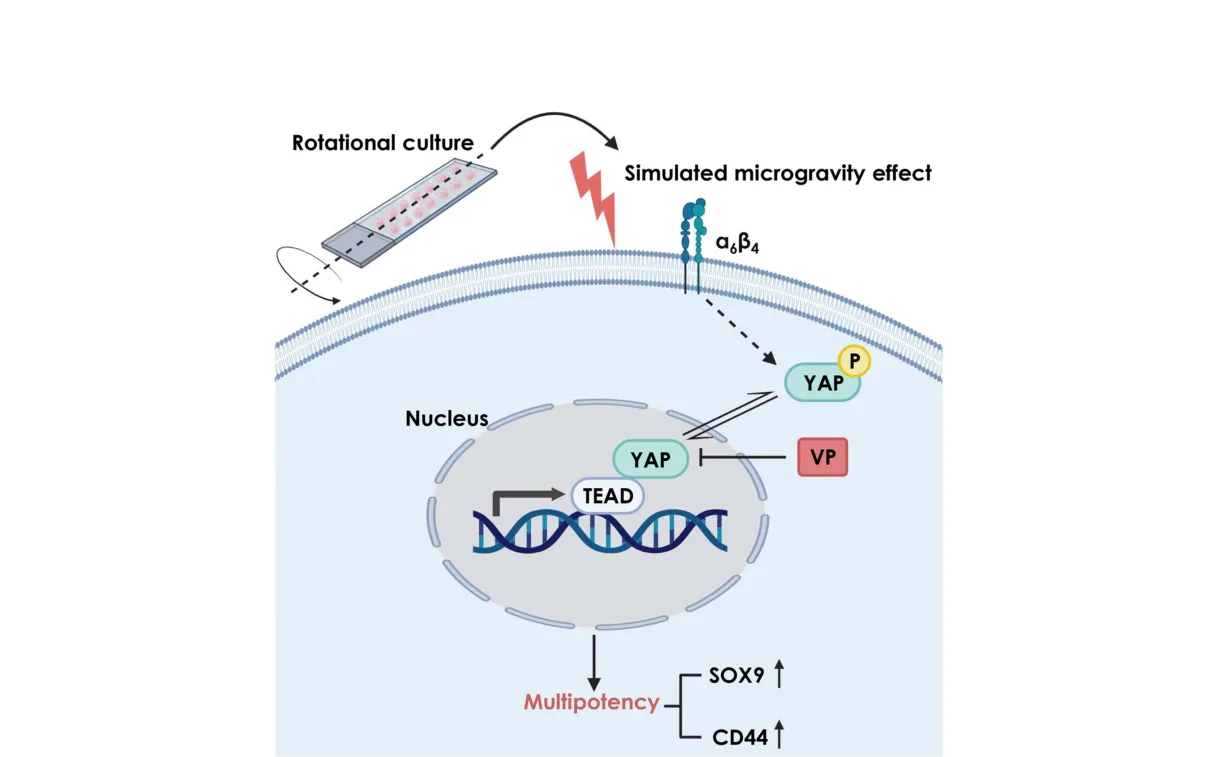
Fig 7:作者提出的 YAP 介导的 HGO 形成机制工作模型。图左上为倾斜的培养装置与旋转箭头,旁标 Rotational culture,红色闪电符号旁标 Simulated microgravity effect;下方为浅蓝色细胞膜与跨膜受体,受体标注 α6β4,并有黑色虚线箭头指向胞内侧的绿色 YAP 圆角框;YAP 框右上附黄色圆形 P 表示磷酸化状态,箭头指向细胞核(Nucleus,虚线圆弧包围)内的另一个绿色 YAP;核内画有 DNA 双螺旋与浅蓝色椭圆 TEAD,两者共同指向转录步骤;右侧红色圆角框标注 VP,其与核内 YAP 之间为 T 形抑制端符号;核下方箭头指向红色文字 Multipotency,右侧括号标注 SOX9↑ 与 CD44↑。
💡 与论文的实际关联说明
先说清事实:对本文全文(54,088 字符)做品牌词检索 —— Celvivo、ClinoStar、ClinoReactor、Cellink、BIO X、3Brain、BioCAM、IVTech、bioreactor 全部为 0 命中。论文使用的是中科院力学研究所自制的旋转平板腔 RFC,以及 Zeiss LSM 880 共聚焦显微镜、Elabscience EdU 试剂盒等通用设备,未使用任何厂商的商用类器官培养设备。
因此本段不列产品对照表,只讲技术路线层面的对应关系:
旋转培养这个物理量,本文给出了目前少见的定量刻度。 全文最有参考价值的不是"旋转有益"这个结论,而是结论所依赖的具体数字:10 rpm 转速、< 1.5 × 10⁻³ g 的离心力估计、3.8 mL 培养腔、20 个 Matrigel 穹顶、每穹顶 4×10³–5×10³ 细胞、7 天自组装、每 2 天换液、VP 0.1 μM。对任何正在评估"要不要上旋转/回转式动态培养"的实验室,这套参数是可以直接拿去做预实验起点的 —— 尤其"离心力 < 1.5×10⁻³ g"这个量级,它量化了"旋转到什么程度才既有效又不伤害细胞"。
三类商用动态培养设备在物理模型上与本文的差别,正好构成选型判据。 旋转平板腔 RFC 是贴着基底转的平面腔:细胞始终黏附在载玻片上,重力方向相对细胞持续变化,同时培养基绕流洗刷细胞表面。旋转壁式生物反应器(RWV)是细胞悬浮在旋转液柱中的,靠离心力把细胞维持在特定半径的"静止轨道"上,机制完全不同。而灌流式微流控是外部驱动液体流动、细胞不动。三种路线对应三种力学输入:本文是"改变重力矢量",RWV 是"施加离心梯度",灌流是"施加剪切"。
本文最有迁移价值的是它对"剪切力"这个指标的祛魅。 旋转培养里没有外加的流体剪切,作者反而专门说明填液时"无气泡"是为了"尽量减小对细胞的剪切力",并把离心力控制在 < 1.5×10⁻³ g。这与"灌流培养靠提高流速来强化传质"的思路正好相反 —— 在某些细胞体系里,强化传质最有效的手段不是加大剪切,而是让重力方向本身不断变化。 对做类器官的客户来说,这是一个与"提高灌流流速"并列、但物理机制完全不同的第二条路径。
一条不能忽略的边界:本文的干性增强是"双向"的。 SOX9 与 CD44 双升对 HepaRG 这类双能性祖细胞意味着保留了未分化潜能。但换到已经定向的细胞系上,同样的操作可能只是延缓分化。对需要定向成熟的模型(肝细胞功能、药物代谢),保留干性未必是好事 —— 应用前必须自己测目标功能读数,而不是照搬"旋转 = 更好"。
🏷️ 结论
- 旋转培养能改变类器官的形成过程本身,不只是形态:在同批种子细胞、同块 Matrigel、同一培养基下,10 rpm 的 RFC 使 HepaRG 肝类器官在前 5 天生长更快(3 天 EdU+ 约 56% vs 22%,p<0.0001)、形态更圆(3 天圆度更高、长宽比更接近 1),7 天时面积差异收敛但增殖优势仍在,且两种条件下均无坏死。
- 机制走的是"整合素 → YAP 核转位 → 干性标志物"这一条轴:7 天转录组检出 948 个差异基因(620↑/328↓),ITGA6/ITGB4 与 YAP1 同时升高;整合素在类器官外周富集(ITGA6 外周/内部 MFI 比值 1.7 → 3.0);YAP 核/胞质比升高(约 0.95 → 1.1)、p-YAP/YAP 下降(约 1.0 → 0.7)、YAP mRNA 近 2 倍。
- 干性标志物 SOX9 与 CD44 在蛋白与 mRNA 两个层面同时被推高,且时间上不同步:3 天是蛋白分水岭(SOX9 蛋白约 8.8 倍,CD44 mRNA 尚为 ns),7 天才是 mRNA 分水岭(CD44 mRNA 约 4.4 倍)—— 早期判读不能只测 mRNA。
- 反向验证闭合:0.1 μM Verteporfin 阻断 YAP-TEAD 后,旋转组与静态组的 YAP 差异消失,下游 CCND1/CYR61 被压低,SOX9 蛋白由约 8.8 倍掉到约 0.4 倍、CD44 mRNA 由约 4.4 倍掉到约 0.8 倍 —— YAP 转录活性是旋转培养维持干性的必要环节。
- 一条方法学警示:作者指出"不同回转器工具下肝细胞读数互相矛盾"(RWV 促进、RPM 抑制),而本文显示形态差异出现在第 3 天、转录差异要到第 7 天才显现 —— 只看终点读数正是既往结论冲突的原因。
- 作者自陈的局限与需谨慎之处:① 结论基于 HepaRG 这一双能性祖细胞系,对已定向成熟细胞系是否成立未验证;② 干性增强是双向的,应用于需要成熟肝功能的模型时须自行验证;③ 旋转组早期增殖更快意味着耗氧更高,作者自己也提到这与 HIF1A 上调互为因果 —— 长期培养的氧耗与营养供给需另行核算;④ 摘要与讨论段所写的整合素 "α4β6" 与正文 Results、Figure 4 图注、Figure 2 基因热图及 Figure 7 图面标注的 α6β4(ITGA6/ITGB4) 不一致,应为该论文自身的笔误。
📖 文献信息
| 项 | 内容 |
|---|---|
| 标题 | Rotating culture regulates the formation of HepaRG-derived liver organoids via YAP translocation |
| 期刊 | BMC Biology(BMC 系列)2024, 22(1), 262(15 页) |
| 发表日期 | 2024-11-15 |
| DOI | 10.1186/s12915-024-02062-1 |
| PMID | 37920845 |
| PMCID | PMC11568593 |
| 作者 | Zhong S, Zheng L, Wu Y, Sun S, Luo Q, Song G, Lü D, Long M(Shaoyu Zhong, Lu Zheng, Yi Wu, Shujin Sun, Qing Luo, Guanbin Song, Dongyuan Lü, Mian Long) |
| 通讯单位 | 中国科学院力学研究所国家微重力实验室(National Microgravity Laboratory, Institute of Mechanics, Chinese Academy of Sciences);HepaRG 细胞由中科院生物化学与细胞生物学研究所提供 |
| 开放许可 | CC BY-NC-ND 4.0 —— 允许非商业性转载与分发、须署名;含"禁改"条款(ND),不可对图片做裁剪或改色等改动;商业用途需另行联系出版方 |
| 全文来源 | 全文 PDF 经永久链接提供(见下方下载段) |
参考文献
- Zhong S, Zheng L, Wu Y, Sun S, Luo Q, Song G, Lü D, Long M. Rotating culture regulates the formation of HepaRG-derived liver organoids via YAP translocation. BMC Biol. 2024;22(1):262. DOI: 10.1186/s12915-024-02062-1
- Chen Z, Luo Q, Lin CC, Song GB. Simulated microgravity inhibits osteogenic differentiation of mesenchymal stem cells through down regulating the transcriptional co-activator TAZ. Biochem Biophys Res Commun. 2015;468(1-2):21-26. DOI: 10.1016/j.bbrc.2015.11.006
- Luo CH, Lü DY, Zheng L, Zhang F, Zhang X, Lü SQ, et al. Hepatic differentiation of human embryonic stem cells by coupling substrate stiffness and microtopography. Biomater Sci. 2021;9(10):3776-3790. DOI: 10.1039/d1bm00174d
- Li W, Wu Y, Hu WH, Zhou J, Shu XY, Zhang XY, et al. Direct mechanical exposure initiates hepatocyte proliferation. JHEP Rep. 2023;5(12):100905. DOI: 10.1016/j.jhepr.2023.100905
- Camberos V, Baio J, Bailey L, Hasaniya N, Lopez LV, Kearns-Jonker M. Effects of spaceflight and simulated microgravity on YAP1 expression in cardiovascular progenitors: Implications for Cell-Based Repair. Int J Mol Sci. 2019;20(11):2742. DOI: 10.3390/ijms20112742
- Coward SM, Selden C, Mantalaris A, Hodgson HJF. Proliferation rates of HepG2 cells encapsulated in alginate are increased in a microgravity environment compared with static cultures. Artif Organs. 2005;29(2):152-158. DOI: 10.1111/j.1525-1594.2005.29026.x
- Moya IM, Halder G. Hippo-YAP/TAZ signalling in organ regeneration and regenerative medicine. Nat Rev Mol Cell Biol. 2019;20(4):211-226. DOI: 10.1038/s41580-018-0086-y
📥 原文 PDF 下载
| 文件 | 下载链接 |
|---|---|
| Zhong 2024 - Rotating culture regulates the formation of HepaRG-derived liver organoids via YAP translocation(BMC Biol 22(1):262,15 页,4.5 MB) | 点击下载 PDF |
转发语: 让类器官转起来这件事,多数人以为是"给细胞吹吹风"。这篇 BMC Biology 给出了具体刻度 —— 10 rpm、离心力不到千分之一个 g,3 天时增殖率从 22% 拉到 56%;更狠的是把机制掰开了:旋转培养提高整合素在外周的分布,把 YAP 推进细胞核,SOX9 和 CD44 跟着抬起来,而加一次 YAP 抑制剂,这些优势直接归零。想要干性,别只会加生长因子,试试把重力方向变一变 🧠⚡
- 联系人:李东伟
- 📞 18045130660
- 🌐 https://www.biokingdom.top