把肝类器官装进毫米级灌流腔:iPSC 三细胞自组装模型的 7 天存活边界
Miniaturizing Hepatic Organoids into a Millifluidic Perfusion Chamber: A 7-Day Survival Envelope for hiPSC-Derived Tri-Cellular Models
📣 摘要
这篇 2023 年 Biomedicines 的研究做了一件在工程上很朴素、但在实验设计上很关键的事:把「人多能干细胞诱导的肝类器官」从静态孔板挪进一个灌流腔体,然后诚实地比较了三种培养条件下的存活曲线。结论并不浪漫——同样的灌流条件,异型类器官(肝细胞 + 间充质干细胞 + 内皮细胞)活得更好,而同型球体(只有肝细胞)死得更快。作者用三细胞比例 10:7:2、每孔 2×10⁶ 细胞接种到 1200 微孔的 AggreWell 板,48 小时内自组装成直径约 200 µm 的聚集体,再用 1.5% 海藻酸钙微珠包埋,送进 LiveBox 毫米级灌流腔,以 330 mL/min 循环培养 96 小时,最长达 1 周。
核心技术选择有四条:
- 把「自组装」当工艺:不用支架、不用打印,靠三种细胞按预设比例在微孔里自己排布,48 小时成型;
- 把「灌流」当救生手段而非增益手段:作者明确指出 200 µm 是静态培养的营养扩散上限,灌流是为了把营养送进类器官中心;
- 把「包埋」当防流失设计:海藻酸微珠不是为了造基质,纯粹是为了不让聚集体被流冲走;
- 把「对照」拆成三层:孔板不动(CTRL1)、包埋不动(CTRL2)、包埋加灌流(LB),把「包埋」和「流动」两个变量分开。
对做类器官工艺的人来说,这篇最值得带走的不是"类器官能活 7 天",而是它证明了一个反直觉的边界条件:灌流不是对所有 3D 结构都友好。同型球体在灌流下存活显著下降,说明流动带来的机械负荷需要一个"结构性缓冲"——在这里就是间充质细胞分泌的基质核心。这条结论直接影响任何一个"要不要上动态培养"的决策。
🔬 研究背景
药物性肝损伤是药物退市的首要原因,而现行金标准本身有系统性偏差。 作者在讨论部分给了一个非常具体的数字:动物实验对肝毒性的预测准确率只有约 50%。这半数的预测失败不是操作问题,而是物种间肝脏代谢差异的结构性问题——同一个化合物在大鼠肝里走一条代谢路径,在人肝里走另一条,毒理结论自然对不上。叠加研发周期长、成本高、以及 3R 原则(替代、减少、优化)的监管压力,体外人类肝模型的必要性不是"锦上添花",而是"必须补位"。
hiPSC 提供了细胞来源,但没有解决结构问题。 从诱导多能干细胞定向分化出肝细胞样细胞(hiHep)的技术在本文写作时已经相对成熟,作者也承认"有相当成熟的方案"。但 2D 单层培养的问题在于:肝细胞一旦脱离三维环境和多种非实质细胞的相互作用,表型会快速退化,白蛋白分泌下降、药物代谢酶表达漂移。作者的原话很直接:2D 培养是获得肝样细胞的必要步骤,但不足以达到稳定成熟的表型。这就把问题从"怎么造出肝细胞"推到了"怎么把肝细胞维持在肝的样子"。
肝脏不是一种细胞,所以单细胞模型注定信息不全。 肝实质细胞负责代谢与合成,间充质细胞提供结构支撑与基质,内皮细胞构成血窦、决定物质交换界面。本文的做法是把三者都从 hiPSC 出发来(内皮用了 HUVEC,因为作者明确说明"目前还没有稳健的 hiPSC 向肝血窦内皮分化的方案"),再按 10:7:2 的比例混合自组装。这个比例的出处是作者前作,属于"沿用已发表的肝脏组成近似值",不是本文新优化出来的参数——这一点在复现时必须注意。
真正卡住长期培养的是扩散距离,不是细胞活性。 作者在结果部分给了一个很干脆的物理判据:聚集体直径约 200 µm,而这个尺寸对长期培养是高度不利的,因为静态条件下营养向三维结构中心的扩散很差。这句话把整个研究的方法论定位讲清楚了——他们不是在优化分化方案,而是在解决"中心缺氧/缺营养"这个传质问题。而解决传质的手段,就是引入连续流动。
为什么是毫米级灌流腔而不是微流控芯片。 论文用的 LiveBox 是一个"体积相当于 24 孔板单孔"的透明腔体,带进出液口。这个尺度选择有实际考量:微流控芯片通道小、剪切高、样品量少,适合单类器官成像,但一个 AggreWell 板的全部聚集体(约 1200 个)要一次性转移进去培养,需要的是毫升级容积的腔体。这条工程折衷意味着:这个系统服务的是"批量药筛",不是"单克隆级观察"。
传质问题的物理量级值得单独算一笔。 氧在组织中的扩散长度通常在 100–200 µm 量级,这就是为什么血管化组织的毛细血管间距被压在同一个范围里。一个直径 200 µm 的球体,中心到表面的最短距离是 100 µm——恰好压在扩散极限上。这意味着它在静态培养里处于一种"临界状态":不是立刻死,而是中心细胞长期处于低氧胁迫,靠降低代谢率维持,一旦培养时间拉长或代谢需求上升(比如肝细胞开始表达 CYP 酶系),中心就会先失活。本文观察到的"所有条件活性都下降",正是这种临界状态在时间轴上的表现。
剪切力在这里是把双刃剑,而作者没有直接测。 灌注带来对流传质,同时也带来流体对细胞表面的机械负荷。论文给出的 330 mL/min 是一个相当可观的循环流量,但它没有报告腔体内的剪切应力数值,也没有做流速梯度实验——这是全文最大的方法学缺口。从工程角度推:同样的流量在不同腔体几何里产生的剪切可以差一个数量级以上,所以这个数字不能跨腔体照搬。这也解释了为什么同型球体在灌流下存活骤降:没有基质骨架的纯细胞球体,其细胞内聚力本就只靠钙黏蛋白,遇到持续流体负荷时,结构先于代谢崩溃。用一个更直白的类比:灌流对类器官是"送氧",对裸球体是"冲刷",两者共用同一套设备,结局却相反。
🧪 实验方法
细胞制备与分化
hiMSC 与 hiHep 均从 hiPSC 分化。hiMSC 的判定用了五条并列证据:多能性基因(OCT4)下调、形态改变、贴壁生长、表面标志物表达(CD105⁺/CD90⁺/CD73⁺,CD34⁻)、以及成骨与成脂双潜能(茜素红 S 染钙沉积、油红 O 染脂滴),并连续传代超过 10 代。hiHep 的分化走 5 天到定型内胚层(hiDE)再向肝系定向的路径,第 9 天(dd9)用于成球,第 21 天(dd21)做肝功能判定,一直养到 dd23。
肝功能证据链分三层:基因层(AFP、AAT mRNA 在 dd9 起上升,dd21 略高于 HepG2)、蛋白分泌层(AFP 约 dd11 出现在培养基、dd15 后下降;AAT 从 dd11 起持续上升)、以及形态层(胞质/核比升高、多边形形态)。AFP 升后降、AAT 持续升这个组合,作者解读为"肝细胞成熟过程中 AFP 向白蛋白切换"的对应现象。
三维成型与动态培养
| 环节 | 原文参数 | 出处 |
|---|---|---|
| 三细胞比例 | hiHeps : HUVECs : hiMSCs = 10 : 7 : 2(沿用前作) | 2.3.2 节 |
| 接种量 | 2×10⁶ cells/well,每孔约 1200 微孔,24 孔板 | 2.3.1 / 2.3.2 节 |
| 成型条件 | 100×g 离心 6 min,37 ℃,48 h 内成型 | 2.3.2 节 |
| 培养基 | 50% HMM + 50% EGM-2 + 5% FBS;隔天半换液 | 2.3.2 节 |
| 包埋基质 | 1.5% 海藻酸钠,溶于 20 mM HEPES-NaOH pH 7.4,0.45 µm 过滤后高压灭菌 | 2.4 节 |
| 成珠 | 21G 针头滴入 102 mM CaCl₂,磁力搅拌,4 ℃ 静置 10 min | 2.4 节 |
| 灌流腔 | LiveBox(透明腔体,体积≈24 孔板单孔),全组件高压灭菌 | 2.4 节 |
| 流速与时长 | 330 mL/min,培养 96 h,48 h 时半换液 | 2.4 节 |
| 分组 | CTRL1(孔板不动)/ CTRL2(包埋静止)/ LB(包埋+灌流) | 3.4 节 |
| 活性读数 | ATP 发光法,每组 30 个聚集体 × 双复孔,标准曲线用 25,000 与 50,000 活细胞 | 3.4 节 |
| 最终时长 | 灌流组培养至 1 周后取材 | 3.4–3.5 节 |
三组对照的设计值得单独说一句:CTRL1 是"完全不动",CTRL2 是"包埋但不动",LB 是"包埋且流动"。这样拆的意义是——如果有人只比较 CTRL1 和 LB,就无法区分改善是来自"流动"还是来自"海藻酸包埋"。作者把包埋这个混淆变量单独隔离出来,这是本文方法学上最扎实的一处。
表 3:方法重构清单(按复现顺序)
| 步骤 | 要做的事 | 关键参数 | 容易出错的地方 |
|---|---|---|---|
| 1. 细胞 | hiPSC → hiMSC(≥10 代)与 hiHep(dd9 成球期)两条线并行 | hiMSC 需 CD105⁺/CD90⁺/CD73⁺、CD34⁻ + 成骨成脂双阳 | 两条线成熟度不同步,混合时 hiHep 状态决定成败 |
| 2. 配比 | hiHep : HUVEC : hiMSC = 10 : 7 : 2 | 总量 2×10⁶ / 孔 | 比例是沿用值,换细胞系须重调,勿当最优解 |
| 3. 成球 | 100×g 6 min 离心进 AggreWell(1200 微孔/孔) | 48 h、37 ℃ | 离心不足则微孔内细胞分布不均,成球大小离散 |
| 4. 收球 | 48 h 后轻柔吹打脱模 | — | 用力过猛会撕开刚形成的细胞间连接 |
| 5. 包埋 | 1.5% 海藻酸钠重悬,21G 针头滴入 102 mM CaCl₂ | 磁力搅拌、4 ℃、10 min | 钙浴时间不足则珠体软、易碎;搅拌过快则珠形拖尾 |
| 6. 装腔 | 微珠转入 LiveBox,全管路高压灭菌后闭合 | 腔体≈24 孔单孔体积 | 气泡是头号杀手,必须在建流前彻底排气 |
| 7. 灌流 | 启动循环,330 mL/min | 96 h;48 h 半换液 | 流量与腔体几何耦合,换腔体必须重算剪切 |
| 8. 读数 | ATP 发光 + RT-PCR + H&E + 三色 IHC | ATP 每组 30 个聚集体×双复孔;标准曲线 25k/50k 细胞 | 聚集体计数不准会让 ATP 归一化失真 |
这张表的价值在于把"论文写了什么"翻译成"明天进实验室要做什么"。三个非参数化的隐性要求也一并列出:管路灭菌必须是整套而非分段(分段灭菌再拼接等于引入污染源);脱模与包埋之间的时间要尽量短(聚集体在无基质状态下暴露过久会松散);灌流启动前必须做气泡检查(气泡进入腔体会瞬间形成气液界面,细胞在该界面上被剪切撕脱)。
📊 核心结果
发现一:三种细胞能在 48 小时内自组装,并自发形成"外实内支"的空间分工
混合接种后,细胞在数小时内开始三维化,48 小时内形成稳定聚集体,且脱离微孔后仍保持三维形态(这是判断"真自组装"而非"模具塑形"的关键指标)。免疫组化把三种细胞分别标记——AFP 标肝细胞(蓝)、CD31 标内皮(红)、CD90 标间充质(棕)——48 小时切片显示三种细胞都在结构内,且分布呈现规律:间充质细胞主要位于核心,肝细胞与内皮细胞偏向外周。
这个分布不是设计出来的,是自组织的结果。它的意义在于:间充质细胞恰好落在最容易缺氧的位置,而它们本身是分泌基质的细胞、对氧需求低于肝细胞。换句话说,自组装在 48 小时内就自发形成了一个"抗缺氧的架构"——核心由耐受力强、产基质的细胞占位,把高耗氧的肝细胞推到营养更好的外周。这一点在后面的灌流实验里变成了存活差异的结构基础。
发现二:灌流对异型类器官是救命,对同型球体是催命
这是全文最反直觉、也最有工程价值的结果。96 小时三条件比较:
| 组别 | 结构 | 培养方式 | 结局 |
|---|---|---|---|
| CTRL1 | 异型类器官 | 孔板静止 | 活性下降 |
| CTRL2 | 异型类器官 | 海藻酸包埋 + 静止 | 活性下降 |
| LB | 异型类器官 | 海藻酸包埋 + 灌流 | 三组中最佳,可维持至 1 周 |
| — | 同型球体(仅 hiHep) | 灌流 | 存活显著下降 |
作者的表述是:所有条件下活性都下降,但动态培养强烈降低球体存活,而同一条动态条件却是类器官培养的最佳设置。
为什么会长成这样?从数据能推出来的是三层:
- 球体缺少"结构性缓冲"。纯 hiHep 球体没有间充质细胞提供的基质骨架,也没有内皮细胞构成的通道,在流动产生的持续机械负荷下缺少耗散机制,结构完整性先崩,活性随后掉;
- 类器官的内核是"耐缺氧 + 产基质"的组合。如前所述,48 小时自组装已把 hiMSC 排在核心,它们既扛得住低氧,又在持续分泌基质,等于自带一个"结构加固层";
- 灌流真正解决的是中心传质。200 µm 直径在静态下中心供氧受限,流动把营养送进去,受益最大的是原本被"推到外周"的肝细胞——它们本来就在营养最好的位置,灌流进一步改善了中心的间充质细胞与内皮细胞的处境。
这条结论的直接含义是:"要不要上灌流"不是一个工艺偏好问题,而是一个"你的 3D 结构里有没有抗机械负荷的组分"的问题。单细胞类型的球体贸然上动态培养,可能比静置更差。
把这条结论放到更大的文献背景里看,它的分量会更清楚。2020 年以来关于类器官"血管化/灌流化"的讨论,多数集中在"怎么把营养送进去"这一个方向上,隐含假设是"流动越多越好"。本文给出的反向证据是:流动本身是一个需要被结构承受的输入。同一个 96 小时窗口、同一套腔体、同一个流速,异型类器官的 ATP 维持在较高水平,同型球体却显著下滑——差异只能来自结构,不能来自设备。这就把"是否上动态培养"从设备采购问题,变成了模型设计问题。
对工艺开发的实际含义可以拆成三步判断。第一步看组分:模型里有没有产基质、耐缺氧的细胞(本文是 hiMSC)。没有的话,先补组分,再谈灌流。第二步看尺寸:聚集体是否已经逼近 200 µm 的扩散极限。低于这个量级,静态培养仍有余量,灌流的边际收益小于它带来的机械风险。第三步看时长:是否需要超过 1 周。本文的 1 周数据是在"包埋 + 灌流"这一最优组合下取得的,意味着静态方案的可靠边界其实更短。这三步的顺序不能颠倒——很多失败的动态培养案例,是直接从第三步("我们要养一个月")跳到买设备,跳过了前两步。
还有一个容易被忽略的工程细节:本文用海藻酸把聚集体"钉"在微珠里,客观上减少了聚集体与腔壁、聚集体之间的碰撞。如果换成一个没有包埋、靠沉降或笼架固定的腔体,同样的流速下机械负荷会更集中,本文的存活结论不能直接移植。这也是为什么我把"包埋"和"流动"分开看:包埋不是惰性的,它在替结构承担一部分机械负荷。
发现三:灌流 1 周后,肝功能标志物不降反升,且中心无明显坏死
灌流培养 1 周后取材做三层验证:
- mRNA 层:AFP、ALB、AAT 三个肝基因相对初始(t0)全部显著上升,其中 ALB 的上升幅度最大。作者强调这一点"特别有前景",因为白蛋白表达上升是肝细胞成熟的强指向;
- 组织层:H&E 染色显示聚集体中心区域仍有活细胞,凋亡/坏死极少。这是对"灌流解决了中心传质"最直接的形态学证据——如果传质没解决,切片上会看到典型的"外圈活、内核死";
- 空间层:三色免疫组化显示 hiHep 主要分布在外表面、hiMSC 规整排列形成结构支撑、HUVEC 聚成环状结构(作者判断"可能是毛细血管新生的起始")。此外多个类器官里出现纤维化核心或环状结构,作者归因于 hiMSC 的基质分泌,并认为这个结构为外层的 hiHep 提供了支撑。
ALB 上升 + 中心无坏死 + 三细胞空间有序,这三条合起来是本文对"动态培养不只是让细胞活着,而是在支持功能成熟"的核心论证。不过需要说明边界:作者没有做药物暴露实验,也没有测 CYP 酶活或代谢产物,所以"可替代动物药筛"是推论,不是本文实测结论。
需要追问的是:为什么 ALB 的升幅比 AFP 和 AAT 都大? 从肝细胞发育的时间逻辑看,AFP 是胎肝标志、ALB 是成熟肝标志,二者在体内是一个此消彼长的关系。本文在分化阶段(dd11–dd15)已经观察到 AFP 先升后降,说明分化程序在按时推进;进入三维灌流后 ALB 大幅上升,意味着细胞在结构支持下继续向成熟方向走,而不是停在胎肝表型。这条读数的价值不在于"升高了"这个事实,而在于它指向的是"成熟度前进"而非"应激反应增强"——因为如果只是应激,通常会看到 AFP 反弹而不见 ALB 系统上升。
再看组织层的证据强度。H&E 显示中心有活细胞、凋亡坏死极少,这是一个定性判断,不是定量。严格来说,要证明"传质问题被解决",需要的是中心与外周的存活率梯度测量(例如用活死染色做分区计数,或用缺氧探针 pimonidazole 标记)。本文没有做这一层,所以它的组织学证据只能支持"没有出现最坏情况",不能支持"氧分布已均匀"。这个区别在向客户解释时很重要:能说"1 周后中心未见坏死",不能说"灌流解决了氧梯度"。后者需要额外的定量实验,属于可以建议客户去补的验证点。
空间层面的三色 IHC 则提供了另一种证据:hiHep 在外表面、hiMSC 形成规整支撑结构、HUVEC 聚成环状团簇。作者把环状团簇解读为"可能是毛细血管新生的起始",这是一个谨慎的措辞——单靠 CD31 形态学无法区分"内皮细胞聚集成团"和"形成了有腔的管状结构",前者是自组织排列,后者才是血管发生。要做这个区分需要 CD31 + 管腔标志(如 Erg、stabilin-2)共染,或电镜。这一点上本文止步于形态学观察,是全文第二个需要标注的边界。
表 2:证据分级
| 结论 | 证据类型 | 强度 | 边界 |
|---|---|---|---|
| 三细胞 48 h 自组装成型,脱模后保形 | 明场成像 + 7 天漂浮观察 | 强 | 单一比例,未做比例梯度 |
| 灌流组类器官活性优于两个静态组 | ATP 发光,30 聚集体×双复孔,≥2 次独立分化,单因素 ANOVA | 中强 | n 较小;未报效应量 |
| 同型球体在灌流下存活显著下降 | 同上 | 中强 | 未做机理验证(无剪切/ROS 读数) |
| 灌流 1 周中心无坏死 | H&E 切片(定性) | 中 | 单时间点,未做定量存活区测量 |
| 肝功能基因(ALB 尤甚)1 周后上升 | RT-PCR,技术三复孔,~1200 类器官混池 | 中 | 混池掩盖个体差异;无蛋白定量 |
| 可替代/补充动物药筛 | 讨论推论 | 弱(本文未实测) | 无药物暴露、无代谢功能读数 |
🖼️ 实验结果图片
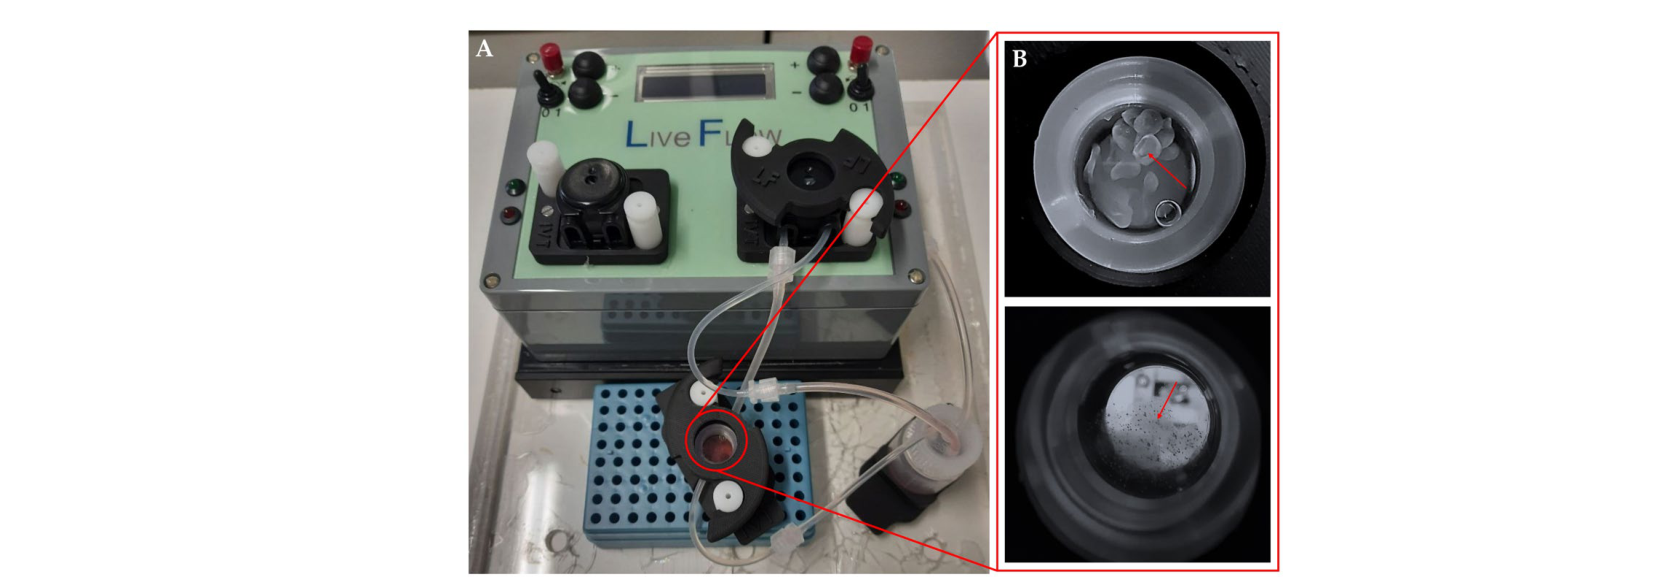
Fig 1|灌流装置与培养腔细节。 图 1 展示 biodynamic 培养的整套物理载体。A 面板是 IVTech LiveBox 灌流系统整机,可看到蠕动泵主机与下方的透明培养腔体模块,腔内走液管路闭合循环;B 面板是培养腔的放大视图,上方红色箭头指向单独的海藻酸微珠(blank bead,用于对照),下方红色箭头指向包裹着类器官的微珠——两者并置是为了说明包埋本身不改变腔内流体环境,差异只来自里面有没有细胞。这张图的价值在于它把"毫升级腔体替代 24 孔单孔"这个尺度替换关系拍了出来:腔体容积与孔板单孔相当,所以一个 AggreWell 板的聚集体可以整批转移,不需要逐孔操作。观察要点是腔体的透明性与接口位置——透明侧壁是为了让倒置显微镜可以直接在位观察,进出液口分置两端则是为了形成单向而非湍流的流场。
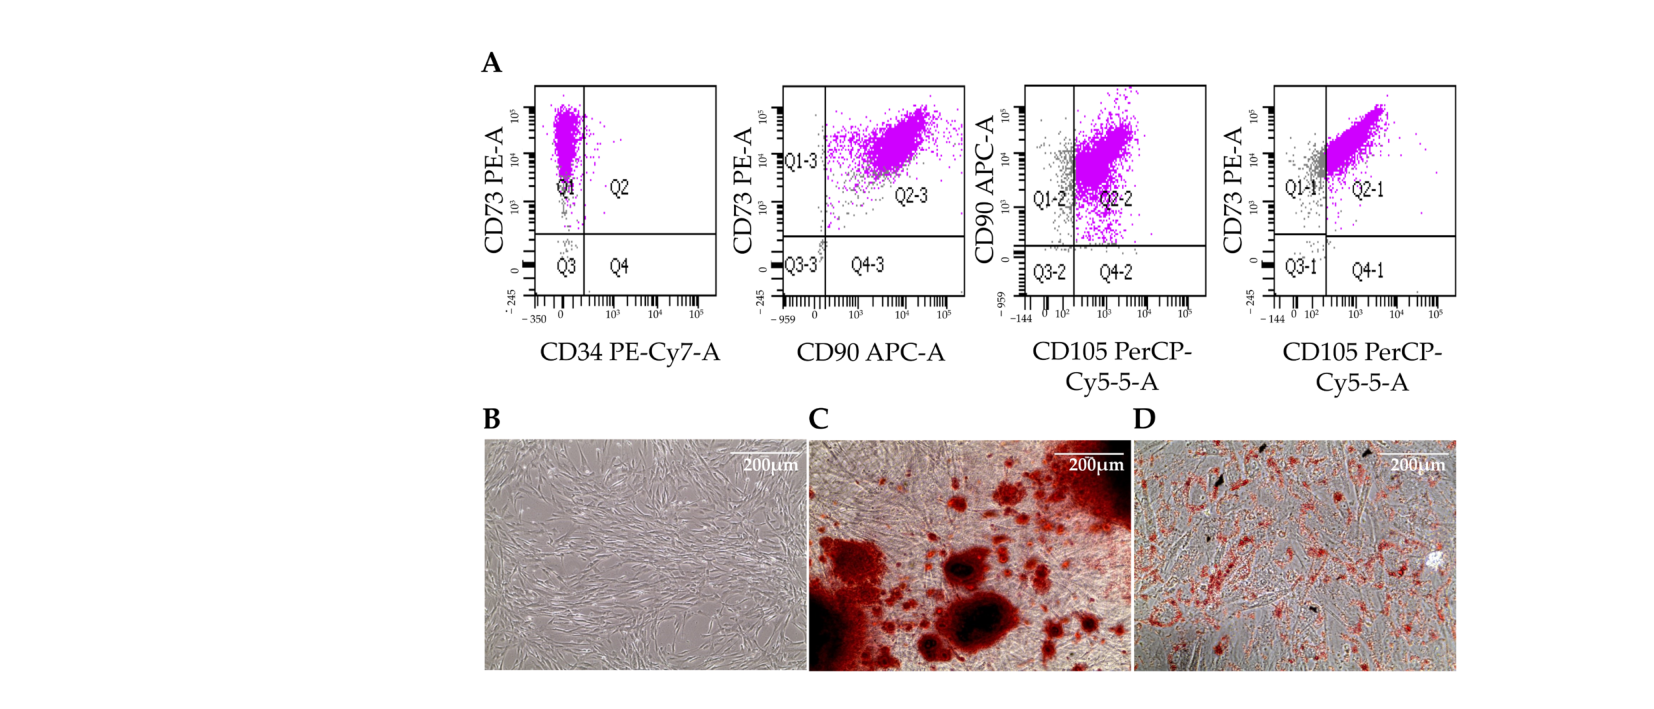
Fig 2|hiMSC 的四重身份验证。 图 2 是间充质干细胞的鉴定组合。A 面板是四张流式散点图,分别对应 CD73-PE、CD34-PE-Cy7、CD90-APC、CD105-PerCP-Cy5.5 四个抗体通道,前三格阳性群集中在右上/右下象限,CD34 一格则几乎无阳性群,构成"三阳一阴"的间充质表型;B 面板是相差显微镜下的细胞形态,呈典型的长梭形、贴壁、旋涡状排列;C 面板是茜素红 S 染色,红色钙结节即为成骨分化的直接证据;D 面板是油红 O 染色,胞内红色脂滴即已成脂分化。四张图合起来覆盖了 ISCT 对间充质干细胞的最低判定要求(表型 + 贴壁 + 双潜能),这也是作者能把它命名为 hiMSC 而非"某种成纤维样细胞"的依据。读图时注意所有标尺均为 200 µm,说明成骨/成脂诱导后的细胞尺度与未分化态基本同级。
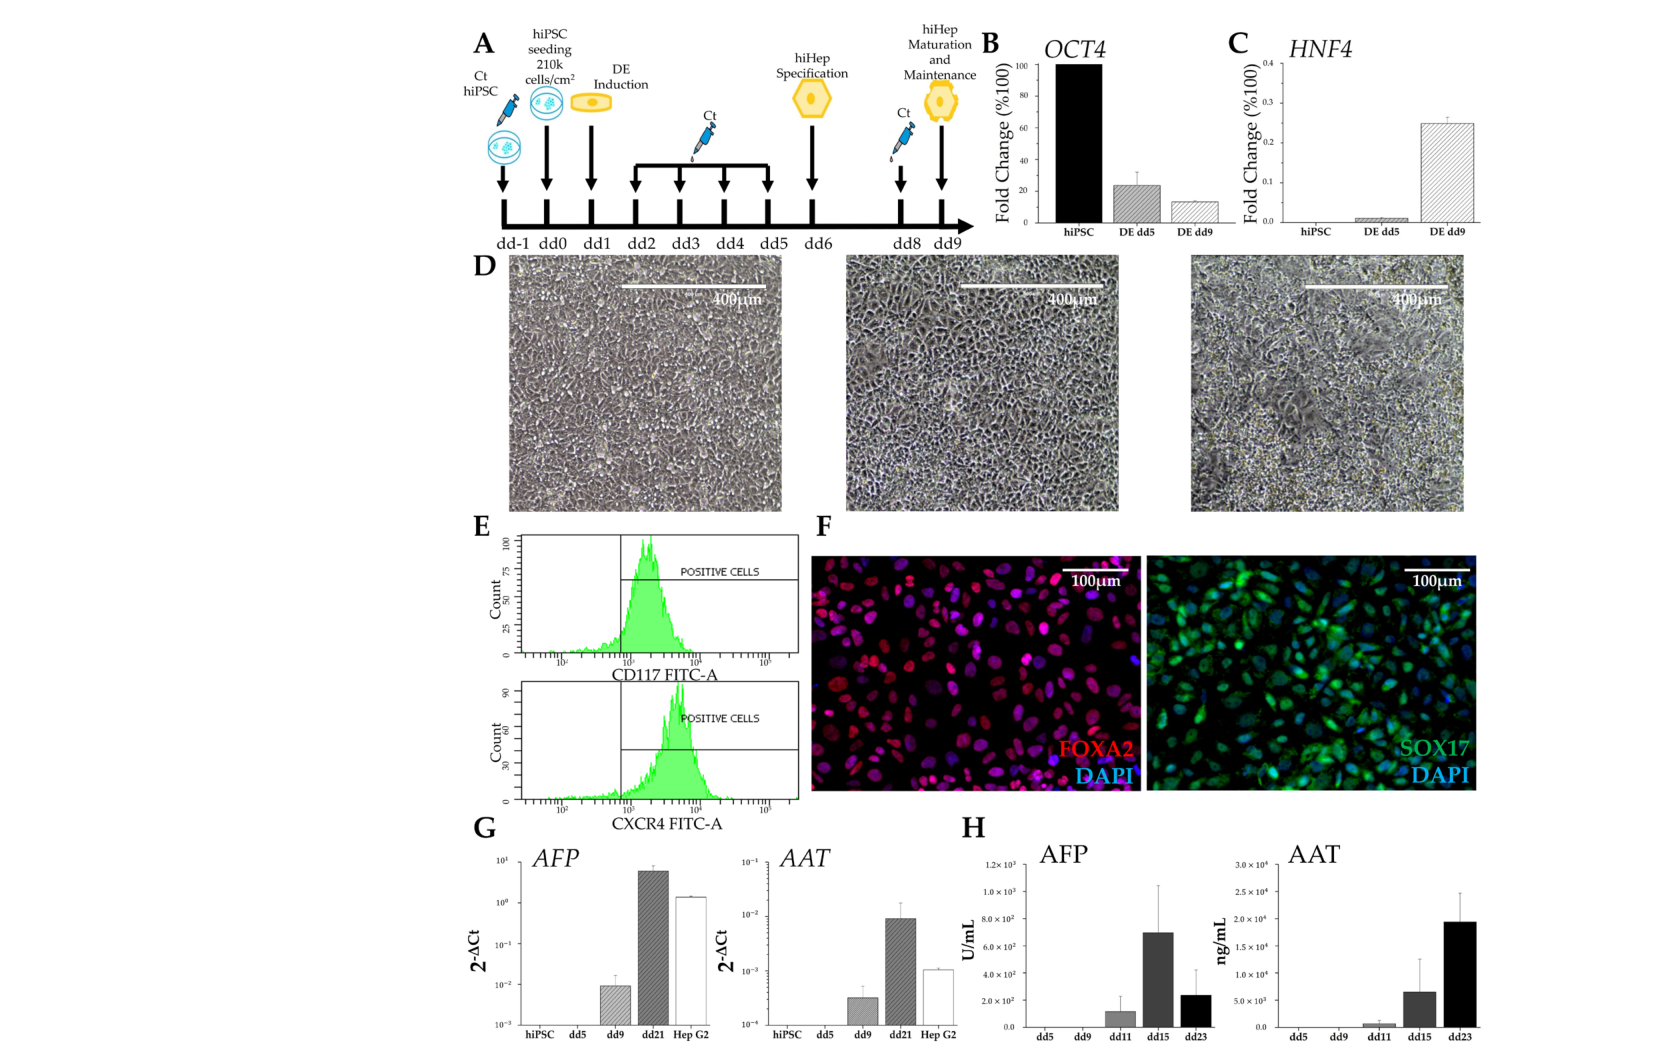
Fig 3|hiPSC 向肝系分化的全过程取证。 图 3 是全文取证最完整的一张,八个面板把"分化成功"拆成可分别证伪的八条。A 是分化时间轴示意,标出 5 天到定型内胚层、随后向肝系定向、dd9 用于成球、dd21 做功能判定的节点;B、C 是 RT-PCR 柱状图,分别显示多能性基因 OCT4 随分化下调、肝系关键因子 HNF4 上调,横轴为 dd5 与 dd9 相对 hiPSC 的 fold-change;D 是三张明场形态图(hiPSC dd0 / DE dd5 / DE dd9),可见细胞从致密克隆逐步摊开、胞质变宽、形成多边形轮廓;E 是 dd9 的流式图,CD117 与 CXCR4 双阳性证明定型内胚层身份;F 是 dd9 免疫荧光,FOXA2(红)与 SOX17(绿)双阳性、DAPI 复染核;G 是 AFP 与 AAT 的 RT-PCR,以 HepG2 为阳性对照,dd21 略高于 HepG2;H 是培养基中 AFP 与 AAT 的分泌曲线,AFP 从 dd11 出现、dd15 后回落,AAT 从 dd11 起单调上升。八格连读的逻辑是:基因开关(B/C)→ 形态改变(D)→ 表面标志(E)→ 核内转录因子(F)→ 终产物基因(G)→ 实际分泌(H),构成一条从"承诺"到"交付"的链条,其中 H 的 AFP 先升后降是成熟度最有力的间接证据。
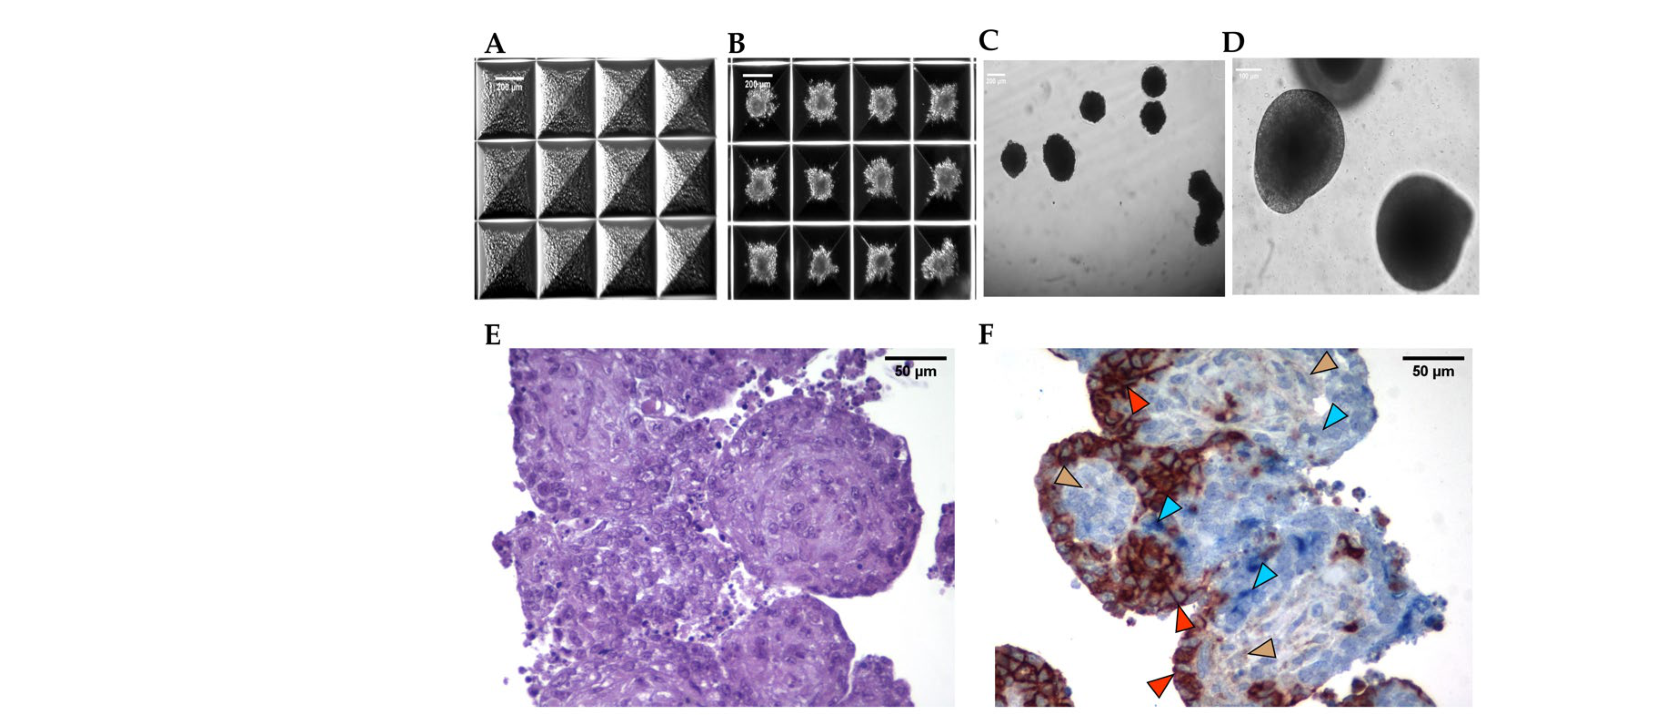
Fig 4|48 小时自组装与三细胞空间分工。 图 4 记录了从单细胞悬液到有序类器官的过程与结构。A 是刚接种时的明场图,细胞在 AggreWell 微孔内呈均匀分散的单细胞状态;B 是 48 小时后,每个微孔内已形成轮廓清晰的致密球状聚集体;C、D 是从微孔中取出后漂浮培养 7 天的聚集体,分别在低倍与高倍下成像,可见其保持球形、边缘完整、未见明显崩解,这是"自组装而非模具成型"的关键判据;E 是 48 小时聚集体的 H&E 染色,显示结构内部的细胞密度与分布;F 是三色免疫组化,蓝色 AFP 标肝细胞、红色 CD31 标内皮、棕色 CD90 标间充质,箭头标出阳性信号位置。F 格的信息量最大:棕色信号集中在核心区、蓝色与红色信号偏向外周,即间充质细胞占内核、肝细胞与内皮占据外层。这个初始空间格局直接决定了后续灌流实验的成败,因为耐缺氧产基质的细胞恰好落在最需要它们的核心位置。标尺分别为 200 µm(A/B/C)、100 µm(D)、50 µm(E/F)。
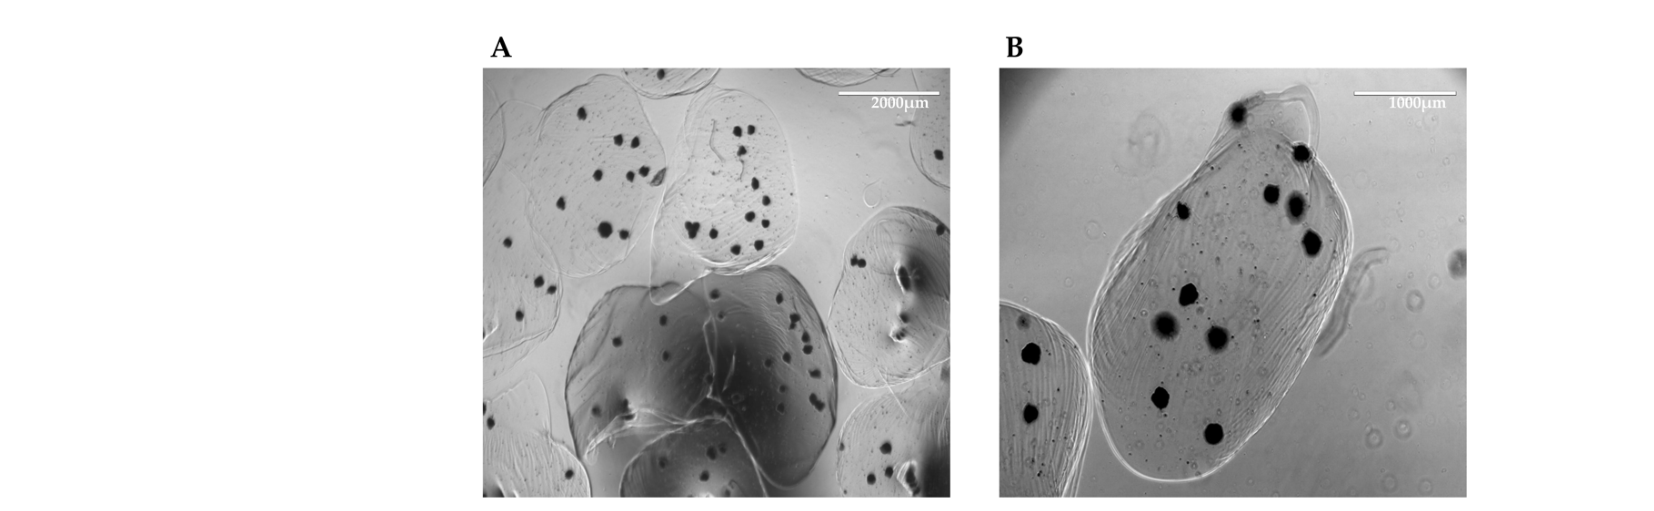
Fig 5|海藻酸微珠包埋的形态与尺寸。 图 5 是防流失设计的直接证据。A 面板为低倍明场(标尺 2000 µm),视野内散布数十颗半透明球形微珠,每颗珠内包裹着一个或数个深色聚集体,珠体轮廓圆整、大小相对均一;B 面板为高倍明场(标尺 1000 µm),可清楚看到单颗微珠内部的聚集体边界与珠体材料的分界,聚集体未贴附珠壁、处于珠内自由位置。这张图回答了两个工艺问题:一是成珠是否均一——21G 针头滴入 102 mM CaCl₂ 加磁力搅拌的经典方案,产出的珠径在同一数量级内;二是包埋是否损伤结构——珠内聚集体保持球形与轮廓完整,未见压扁或破碎。同时要看清一个设计意图:海藻酸在这里不承担"提供基质信号"的角色,它只是物理笼子,所以浓度取 1.5%(偏低,利于传质),凝固剂用钙离子交联 10 分钟(温和,4 ℃ 进行)。读这张图时容易忽略的一点是珠内没有血管化通道,营养仍要靠扩散穿过珠体,因此包埋本身会略微增加传质阻力——这正是必须叠加灌流的原因。
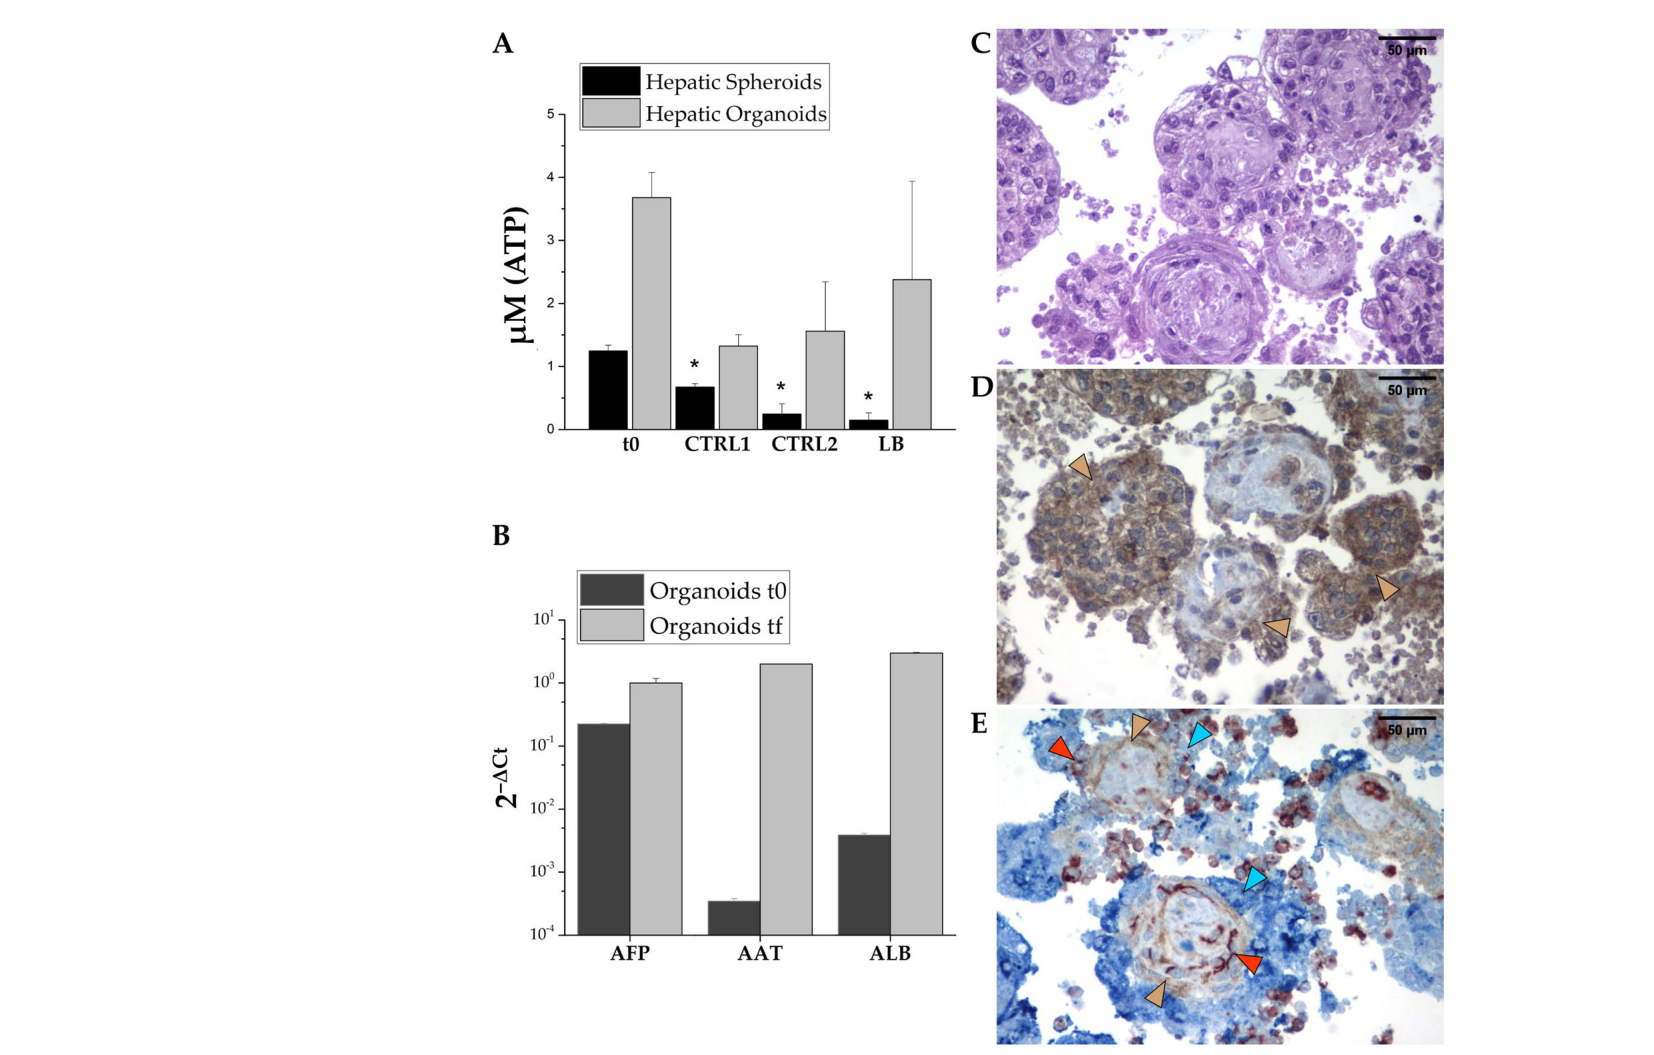
Fig 6|存活、成熟与空间组织的三重读数。 图 6 是全文结论的落点,五个面板对应三类读数。A 是 ATP 活性箱线图,横轴为 t0、CTRL1、CTRL2、LB 四组,浅灰柱为异型类器官、黑柱为同型球体,纵轴为 ATP 浓度(µM),可见 LB 组类器官维持在较高水平而球体在灌流下明显下滑,组间比较用单因素 ANOVA,p<0.05;B 是 AFP、ALB、AAT 三基因在 t0 与灌流 1 周后的 RT-PCR 对比,三者均上升、ALB 升幅最大;C 是灌流 96 小时后异型类器官的 H&E 切片,中心区域可见密集活细胞、无明显坏死腔;D 是白蛋白免疫组化,棕色箭头标出白蛋白阳性细胞,说明蛋白合成在进行;E 是三色免疫组化,蓝色 AFP 标肝细胞、红色 CD31 标内皮、棕色 CD90 标间充质,可见肝细胞偏外表面、间充质形成结构支撑、内皮聚成环状团簇。五格合读形成一条闭环:活性(A)→ 基因(B)→ 组织完整性(C)→ 蛋白功能(D)→ 空间组织(E),其中 C 与 E 是"中心没有死"这个核心主张的直接形态学支撑,也是判断灌流是否真的解决了传质问题的唯一硬证据。
💡 与 5 大可应用产品的关联
这篇论文的设备依赖非常集中:整套动态培养只用了 LiveBox 一个腔体 + 一台循环泵。这意味着它对我们手上的产品线不是"沾边",而是"直接命中"。
| 产品 | 关联度 | 与本文的对应关系 | 客户场景 |
|---|---|---|---|
| IVTech LiveBox1 (LB1) | ⭐⭐⭐⭐⭐ | 本文动态培养的唯一腔体,原文明确"体积相当于 24 孔板单孔";LB1 正是透明、可高压灭菌、可放倒置显微镜的 24 孔级腔体 | 药企肝毒性筛选、3D 模型长期培养 |
| IVTech LiveFlow | ⭐⭐⭐⭐⭐ | 本文 "330 mL/min 循环" 的驱动端;LiveFlow 四路独立回路可在培养箱内运行,正好支撑 CTRL1/CTRL2/LB 这类多条件并行 | 需要多条件对照的工艺开发 |
| IVTech MultiDyn | ⭐⭐⭐⭐ | 本文三组对照同时培养的需求,可被 MultiDyn 的"单架 4 个独立平行实验"直接承接,且支持倒置显微镜实时监测 | 培养基/流速/密度参数筛选 |
| Celvivo ClinoStar | ⭐⭐⭐⭐ | 本文明确指出 200 µm 静态培养受限于中心传质;旋转式低剪切培养是同一问题的另一条解法,剪切负荷显著低于泵驱动灌流 | 对剪切敏感的类器官长期培养 |
| 3Brain BioCAM X | ⭐⭐⭐⭐ | 本文只做了 ATP 活性与基因/蛋白读数,缺功能层电生理;肝类器官的同步放电与药物响应需 MEA 补位 | 肝毒性功能验证、药效读数 |
怎么用这份关联做客户沟通:当客户问"静态培养能不能撑到 7 天",这篇给的是可引用的实证边界——200 µm 直径在静态下中心供氧受限,1 周是硬上限。当客户问"上灌流会不会更好",这篇给的答案是有条件的:如果你的模型是单一细胞类型的球体,灌流可能让存活更差;只有当结构里存在产基质、耐缺氧的支撑细胞时,灌流才转为正收益。这个"条件性结论"比无脑推荐设备更有说服力,也更能筛出真正需要灌流系统的客户。
方法迁移到我们自己的平台:本文的三层对照设计(不包埋不动 / 包埋不动 / 包埋流动)值得直接搬进 demo 方案——它能把"包埋"和"流动"两个变量的贡献分开,避免客户把包埋带来的改善误归因于设备。
选型的三个岔路口。 同样是 IVTech 的腔体,客户问"我该用哪个"时,判断逻辑不是参数高低,而是实验结构:
- 如果做的是单条件、长期、需要随时镜下观察(本文场景),LiveBox1 的透明 24 孔级腔体最贴合——容积与孔板单孔相当,整批聚集体可一次转入,不必逐孔操作;
- 如果做的是两种细胞群体的屏障或共培养(例如肝细胞与内皮分处两侧),LiveBox2 的双腔连通结构才是对的工具,本文这种三细胞混匀自组装用不上它;
- 如果做的是参数筛选(流速 × 密度 × 培养基),MultiDyn 的单架 4 个独立平行实验能一次跑完,比反复拆装 LiveBox 更省时间,且可在位显微监测;
- 泵端按回路数选:一次跑 3–4 个条件用 LiveFlow 的四路独立回路;通道更多、需要每路独立参数时看 ONE 的 4 通道 / 8 通道版本。
需要说明的是,上述选型是基于公开产品参数与本文实验结构做的方法学匹配,不是本文实测结论;具体配置与报价需向厂家确认(本系列不代填价格)。
如果客户现在就有一个"静态养不过 1 周"的模型,建议的验证路径是:先用本文的三层对照跑一遍最小实验(约 1 周,样品量 3 组 × 30 聚集体),拿到自己体系里的 ATP 曲线;如果冻存/复苏或换批次后曲线波动大,再考虑把对照扩展到 MultiDyn 的多条件并行。这条路径的好处是先花小成本确认"问题真的在传质",而不是一上来就为"灌流"这个方案买单。
🏷️ 结论
- 200 µm 是静态培养的传质天花板,1 周是它的时间边界。本文用实测存活曲线把这个边界钉住了:不是"类器官不能长期养",而是"超过这个尺寸、超过这个时长,必须引入对流"。
- 动态培养的收益取决于结构组成,不是普适增益。异型类器官在灌流下最优、同型球体在灌流下最差,同一条条件给出相反结局,根因是结构里有没有"抗机械负荷 + 耐缺氧 + 产基质"的组分。
- 自组装能自发形成抗缺氧架构。48 小时内间充质细胞自动占位核心、肝细胞外移,这个空间分工不是设计出来的,却是灌流能成功的结构前提。
- 海藻酸包埋是工程手段,不是生物学手段。1.5% 浓度、21G 针头、102 mM 钙离子、10 分钟 4 ℃ 交联,目的只是防流失;它同时带来轻微传质阻力,必须与灌流配套使用。
- "可替代动物药筛"仍是推论。本文没有药物暴露、没有 CYP 酶活、没有代谢产物定量;要走到替代,还缺功能层与代谢层的读数。
- 复现时最容易踩的三个坑:比例 10:7:2 是沿用值而非优化值(换细胞系需重调);330 mL/min 对应的是本腔体几何,换腔体必须重算剪切;内皮用的是 HUVEC 而非 hiPSC 来源(作者明确说明后者尚无稳健方案)。
📖 文献信息
| 项 | 内容 |
|---|---|
| 标题 | Human iPSC-Derived 3D Hepatic Organoids in a Miniaturized Dynamic Culture System |
| 期刊 | Biomedicines(MDPI)2023, 11(8), 2114 |
| 发表日期 | 2023-07-26(收稿 06-22,修回 07-19,接受 07-25) |
| DOI | 10.3390/biomedicines11082114 |
| PMID | 37626611 |
| 作者 | Calamaio S, Serzanti M, Boniotti J, Fra A, Garrafa E, Cominelli M, Verardi R, Poliani PL, Dotti S, Villa R, et al. |
| 通讯单位 | 布雷西亚大学(University of Brescia)分子与转化医学系;意大利 3R 中心 |
| 开放许可 | CC BY 4.0(可转载,需署名) |
| 基金 | Ministero della Salute(3R-IZSLER D.LGS 26/2014) |
| 利益冲突 | 作者声明无利益冲突 |
📥 原文 PDF 下载
| 文件 | 下载链接 |
|---|---|
| Calamaio 2023 - Human iPSC-Derived 3D Hepatic Organoids in a Miniaturized Dynamic Culture System | 点击下载 PDF |
转发语: 类器官到底能养多久?这篇把答案钉在 200 µm 和 1 周两个数上——静态培养卡在传质,上灌流也不一定更好,同型球体灌流反而死得更快。真正决定成败的,是结构里有没有"扛得住流动、又耐缺氧"的支撑细胞。
- 联系人:李东伟
- 📞 18045130660
- 🌐 https://www.biokingdom.top